英文标题:A four-dimensional spatial transcriptome atlas of barley caryopsis development and germination
发表期刊:The Plant Cell
影响因子:11.6
发表时间:2026年(在线发表)
技术策略:空间转录组(连续切片 2D/3D 重建)、伪时间轨迹分析、共表达模块分析等
物种样本:大麦(Hordeum vulgare cv. La Trobe)颖果,覆盖发育期 4 个时间点(授粉后 3/6/12/20 天)与萌发期 5 个时间点(吸胀后 0/1/3/6/24 小时),共 84 张连续切片
这篇文章采用"连续切片采样 → 四维图谱构建 → 组织聚类注释 → 能量代谢途径空间解析 → 糊粉层轨迹与转录因子挖掘"的路线,构建了首个大麦颖果发育与萌发的四维(三维空间 + 时间维度)空间转录组图谱,以"能量生物学"为切入点系统解析了淀粉代谢、糖运输与线粒体/叶绿体功能的亚组织定位,并配套公开可视化数据库,为禾本科籽粒研究提供了标杆性资源。
一:实验设计与 4D 图谱构建(Figure 1)
逻辑:传统 bulk 转录组丢失了籽粒内部精细的空间信息,单细胞测序又无法保留组织原位结构。作者用连续切片 + 空间转录组,把"位置"和"时间"同时装进了基因表达图谱。
取样策略:发育期每个时间点取 4 张纵切连续切片(8 μm 厚),覆盖合胞体期、细胞化期、早期与晚期储藏期;萌发期每个时间点取 8 张横切连续切片,覆盖吸胀与停滞期;加上团队此前发表的萌发纵切数据,共计 84 张切片。连续切片互为"重复",并借此重建出 z 轴第三维度,叠加时间轴后形成 4D 图谱。
数据质量:发育数据集含 25,892 个组织下 spot、20,708 个表达基因;萌发横切数据集含 22,841 个 spot、17,279 个基因。重复切片间相关系数高达 0.94–0.997,检出灵敏度可低至 0.1 TPM 的低表达基因,与 bulk 组织转录组相当。
资源开放:所有 2D/3D 表达数据均可在公开浏览器(barley-4d.latrobe.edu.au)中交互查看。
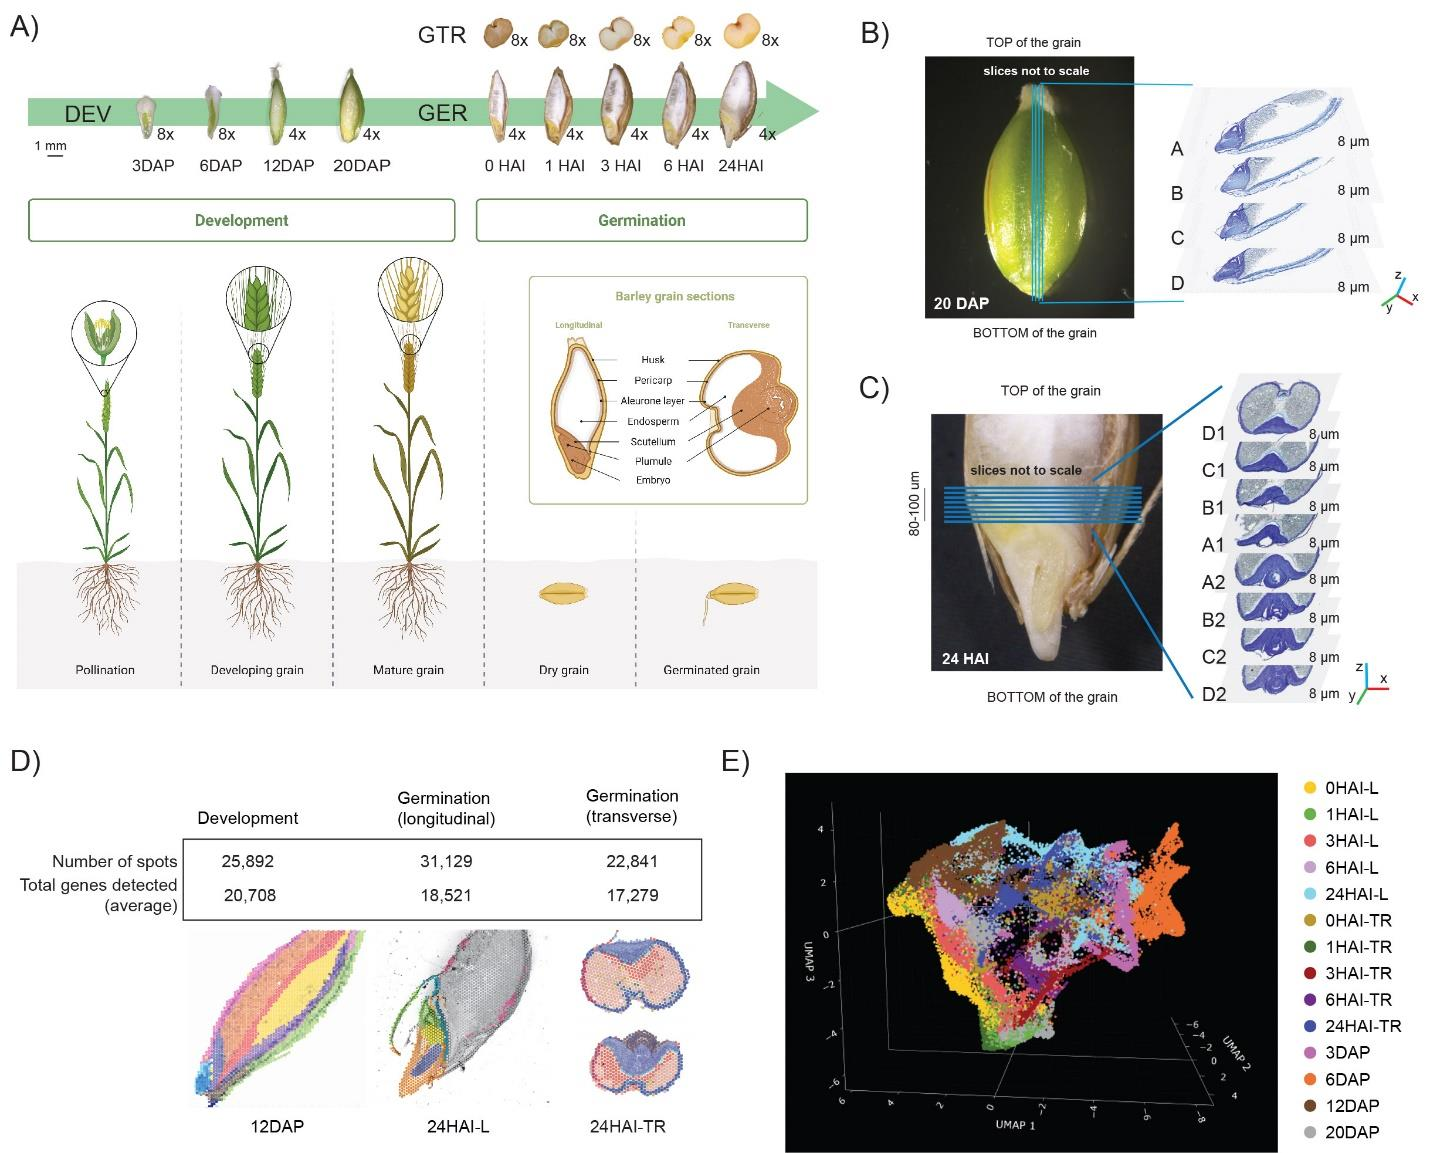
图1. 大麦颖果发育与萌发 4D 空间转录组图谱的采样设计、连续切片策略与数据概览。
二:组织聚类与时空注释(Figure 2 & 3)
方法:无监督聚类直接叠加到明场切片图像上,结合组织学图像、文献标记基因与计算鉴定的标记基因进行注释。
核心发现(Figure 2):发育系列共鉴定 41 个聚类。早期(3/6 天)颖果结构简单,果皮共享转录状态;6 天时即可分辨上下两层表皮。12 与 20 天淀粉胚乳分属不同聚类,说明同一组织内部基因表达域随时间动态切换;维管束、绿色组织、盾片、胚根鞘等均可被独立聚类精准捕获。
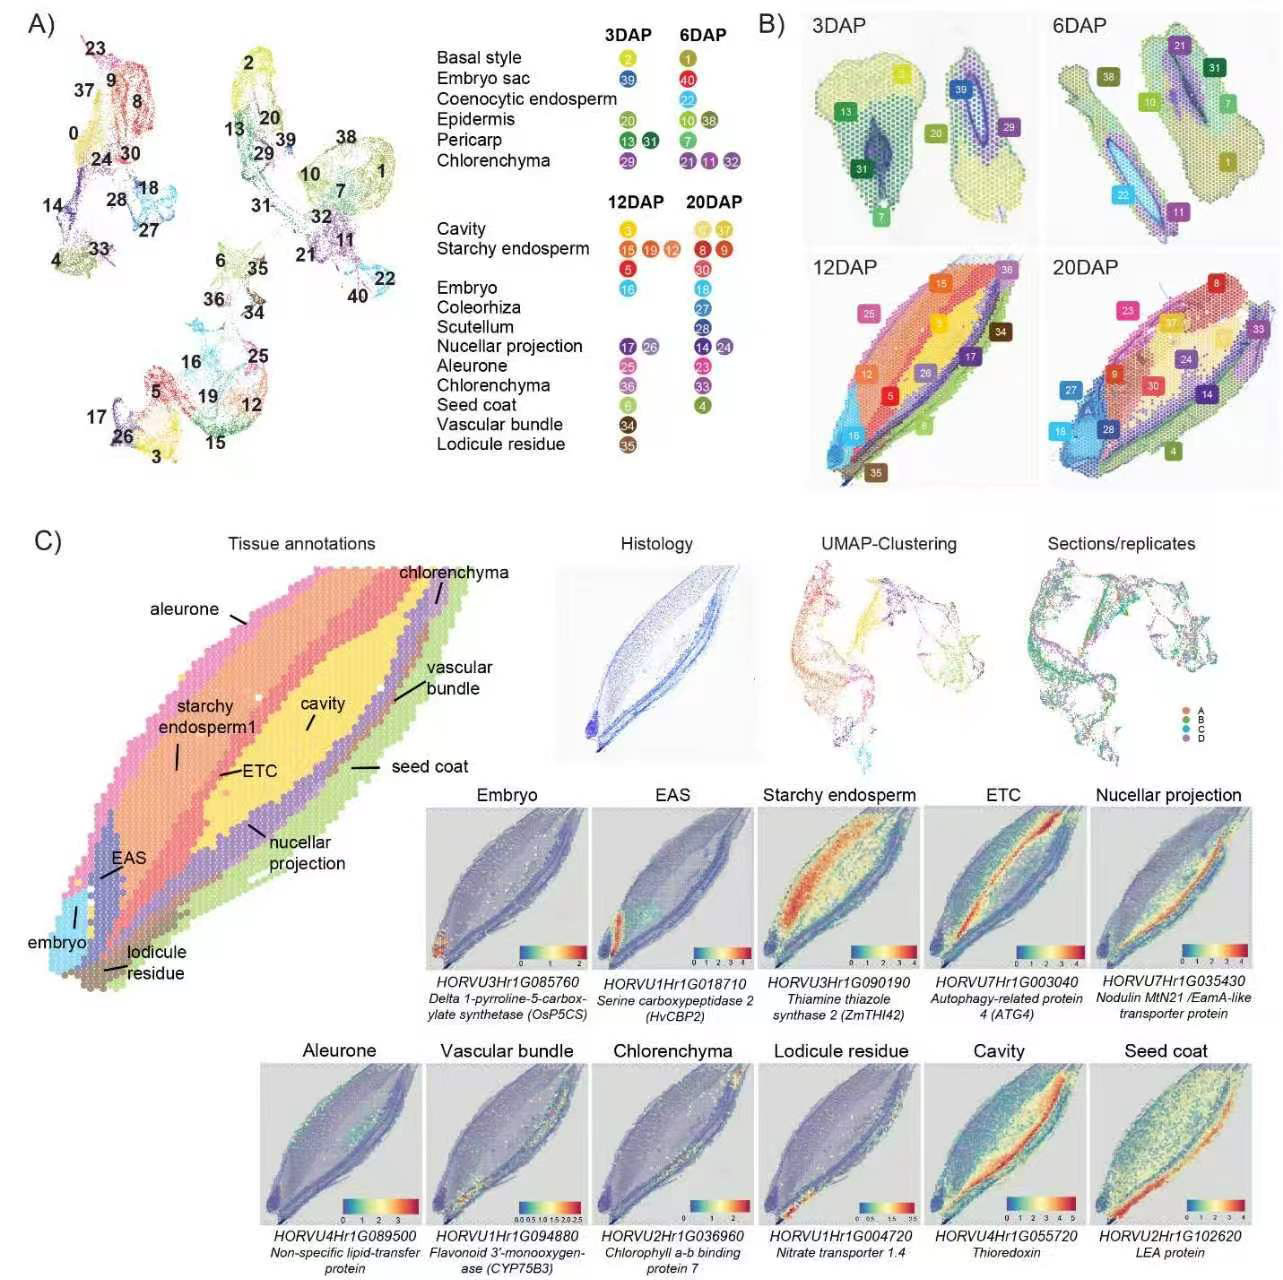
图2. 大麦颖果发育时间序列的空间聚类降维与组织注释。
核心发现(Figure 3):萌发横切系列鉴定 27 个聚类。糊粉层、亚糊粉层、盾片、胚芽鞘等标记基因在 0–24 小时的时间跨度内保持稳定的空间特异性,反映萌发期时间间隔窄、细胞身份已在发育期建立的特点。
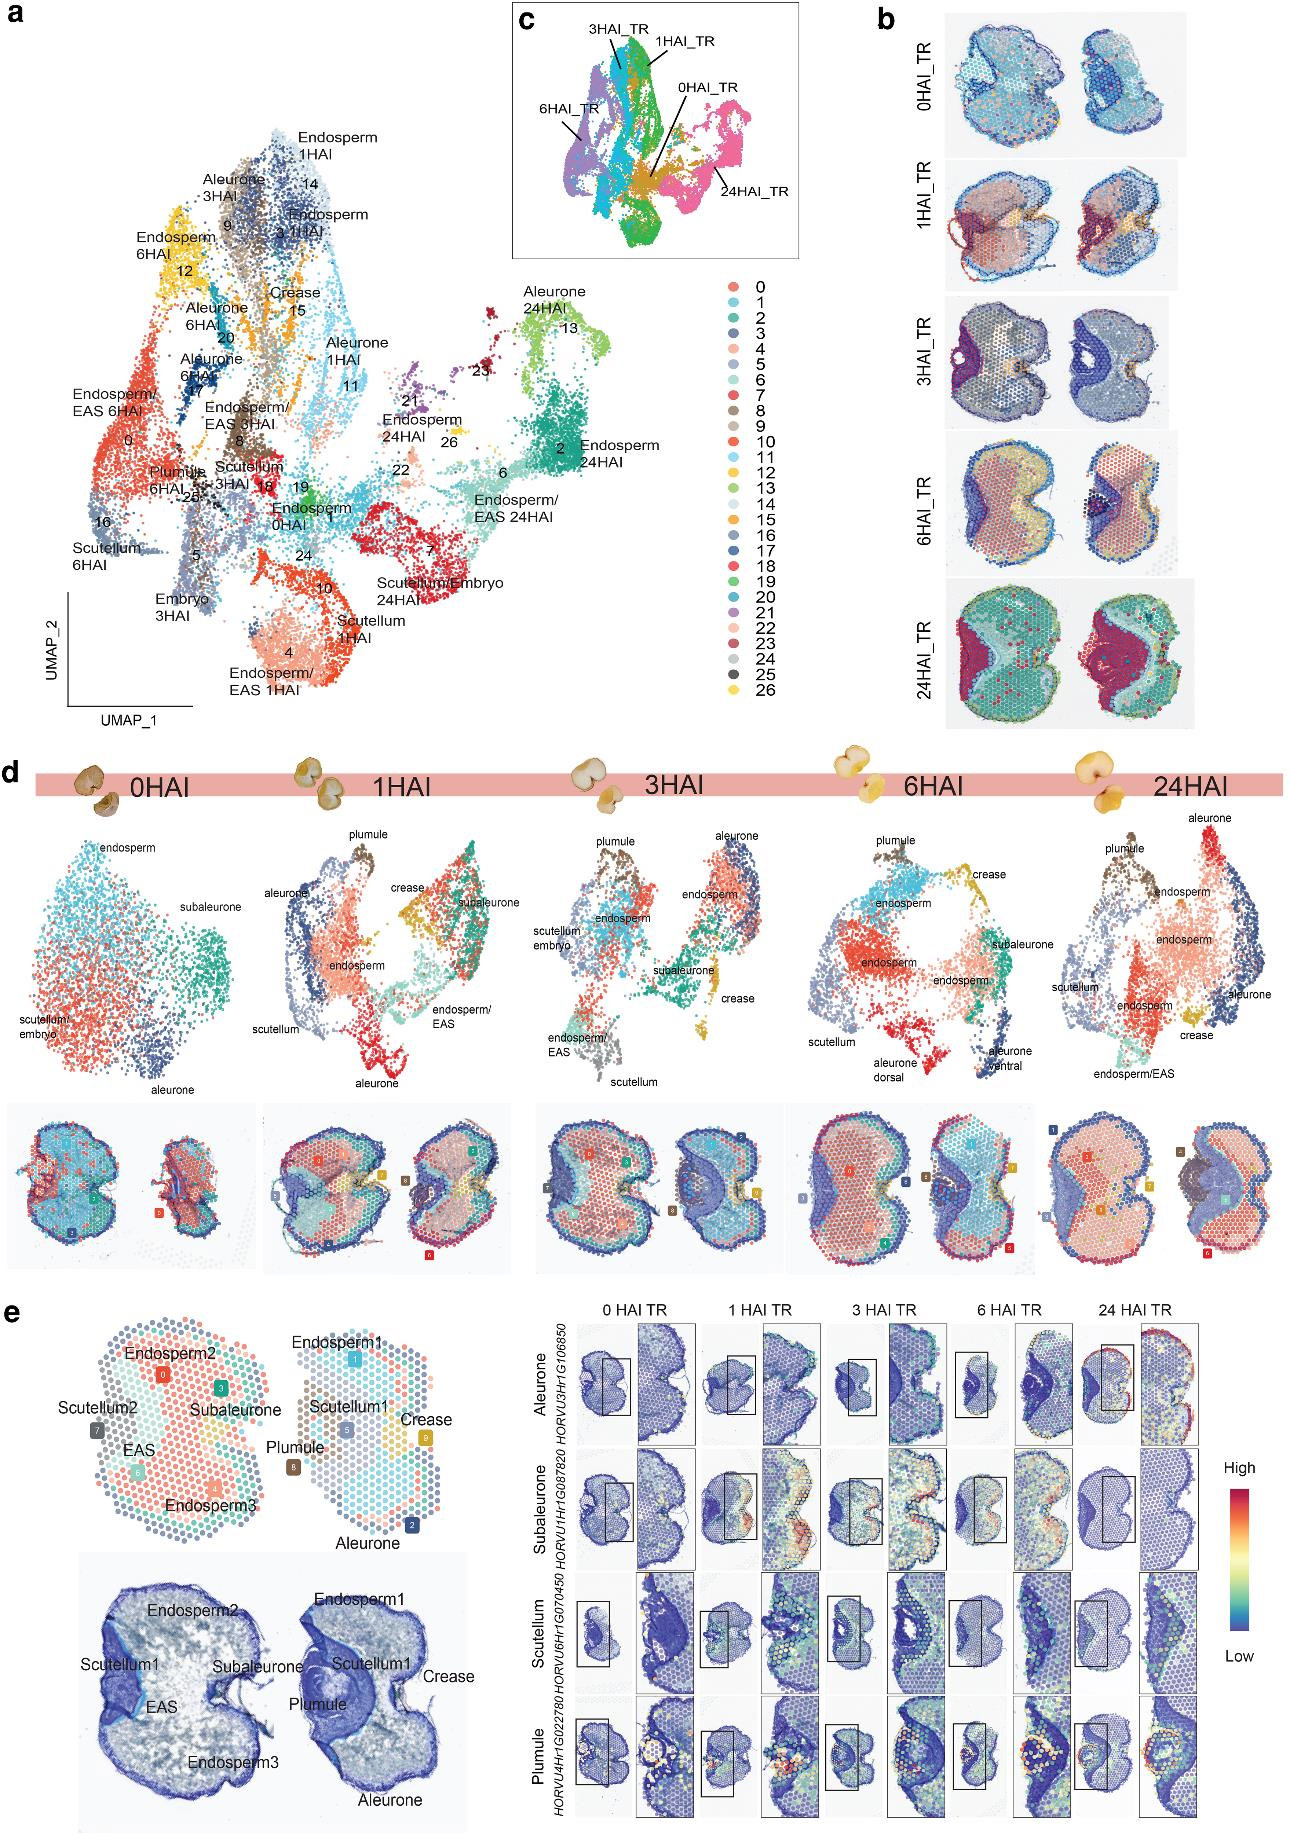
图3. 大麦颖果萌发(横切)时间序列的空间聚类与组织注释。
三:能量生物学视角——淀粉、糖运输与线粒体功能(Figure 4–7)
淀粉代谢(Figure 4):GBSS1a 与 GBSS1b 呈现"母系 vs 子系"的区室化表达——发育早期 GBSS1b 富集于果皮等母系组织,储藏期 GBSS1a 主导淀粉胚乳、GBSS1b 转向胚;萌发期 GBSS1a 集中于亚糊粉层。BAM1、SBE1 等降解基因在三维重建中呈现远近端切片差异显著的"马赛克"式异质表达,这是 bulk 测序永远无法看到的层次。
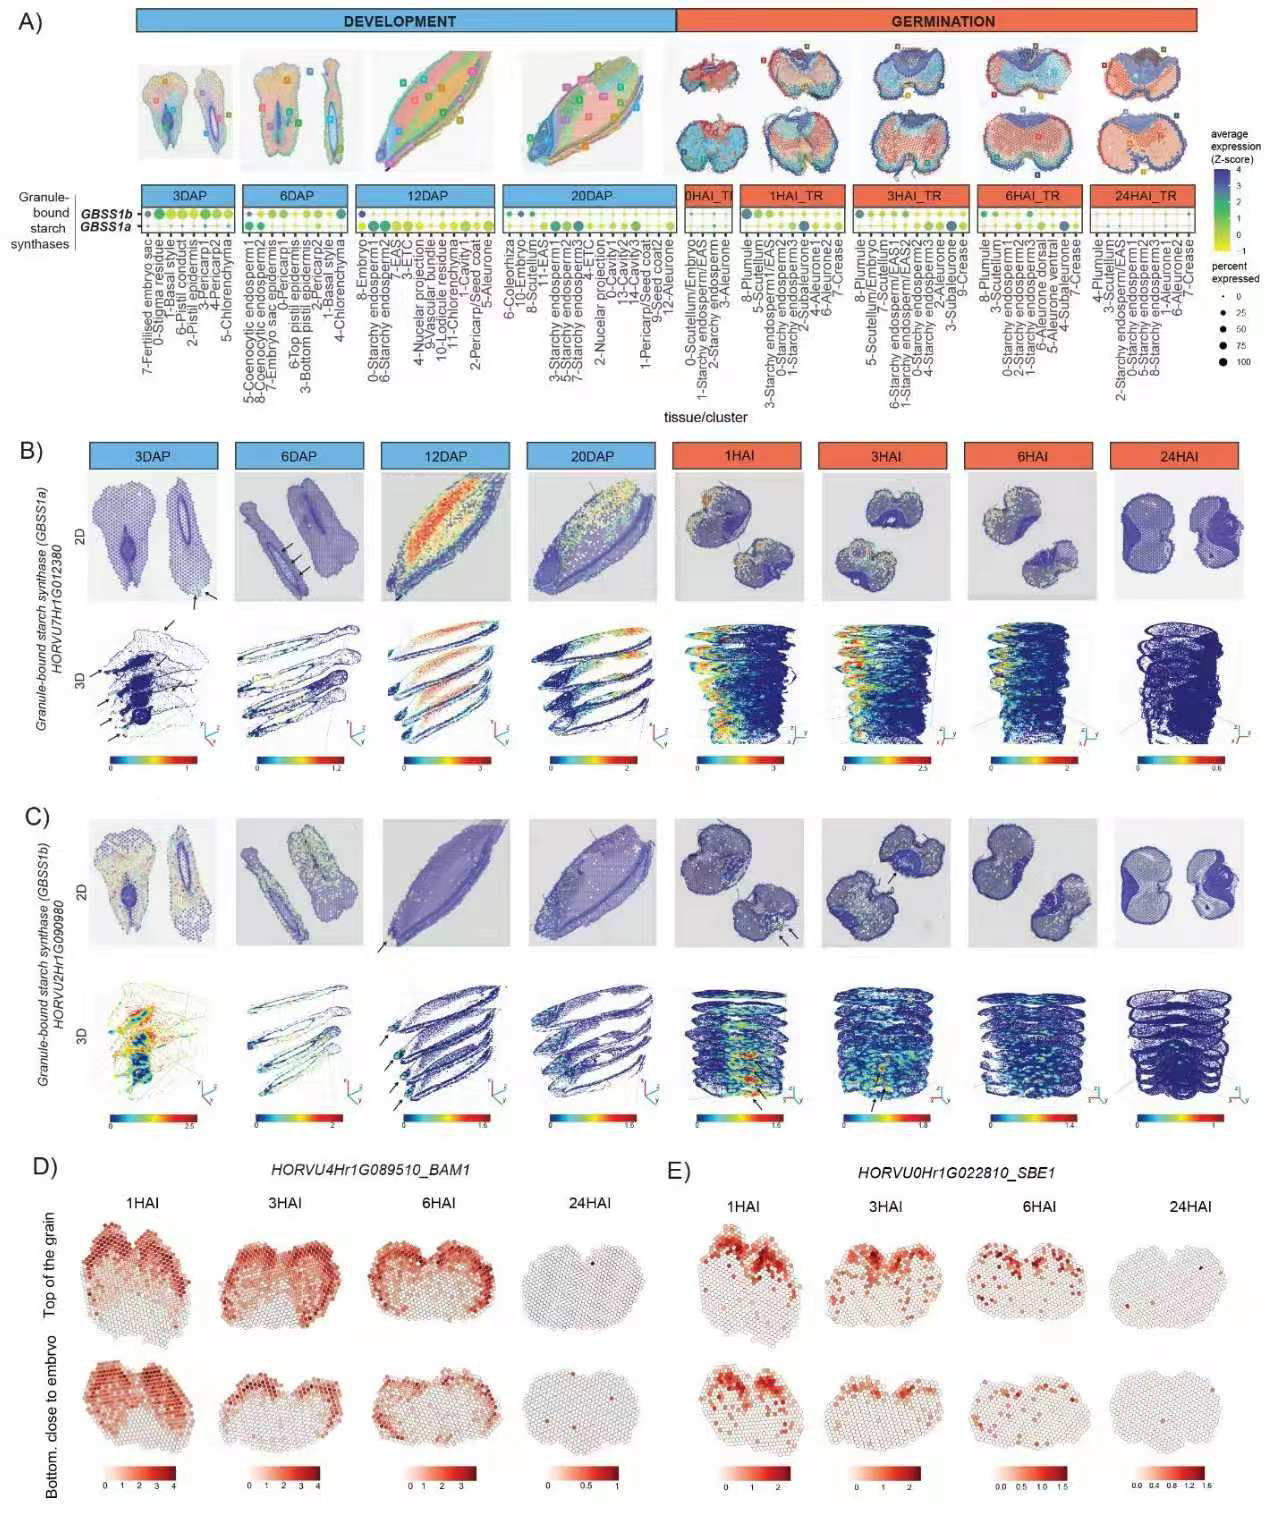
图4. 淀粉代谢基因在颖果发育与萌发中的空间表达景观。
管家基因对照(Figure 5):Actin、Tubulin、金属硫蛋白、LEA 等基因在 2D 与 3D 上均呈均匀表达,从反面验证了上述异质模式的真实性。
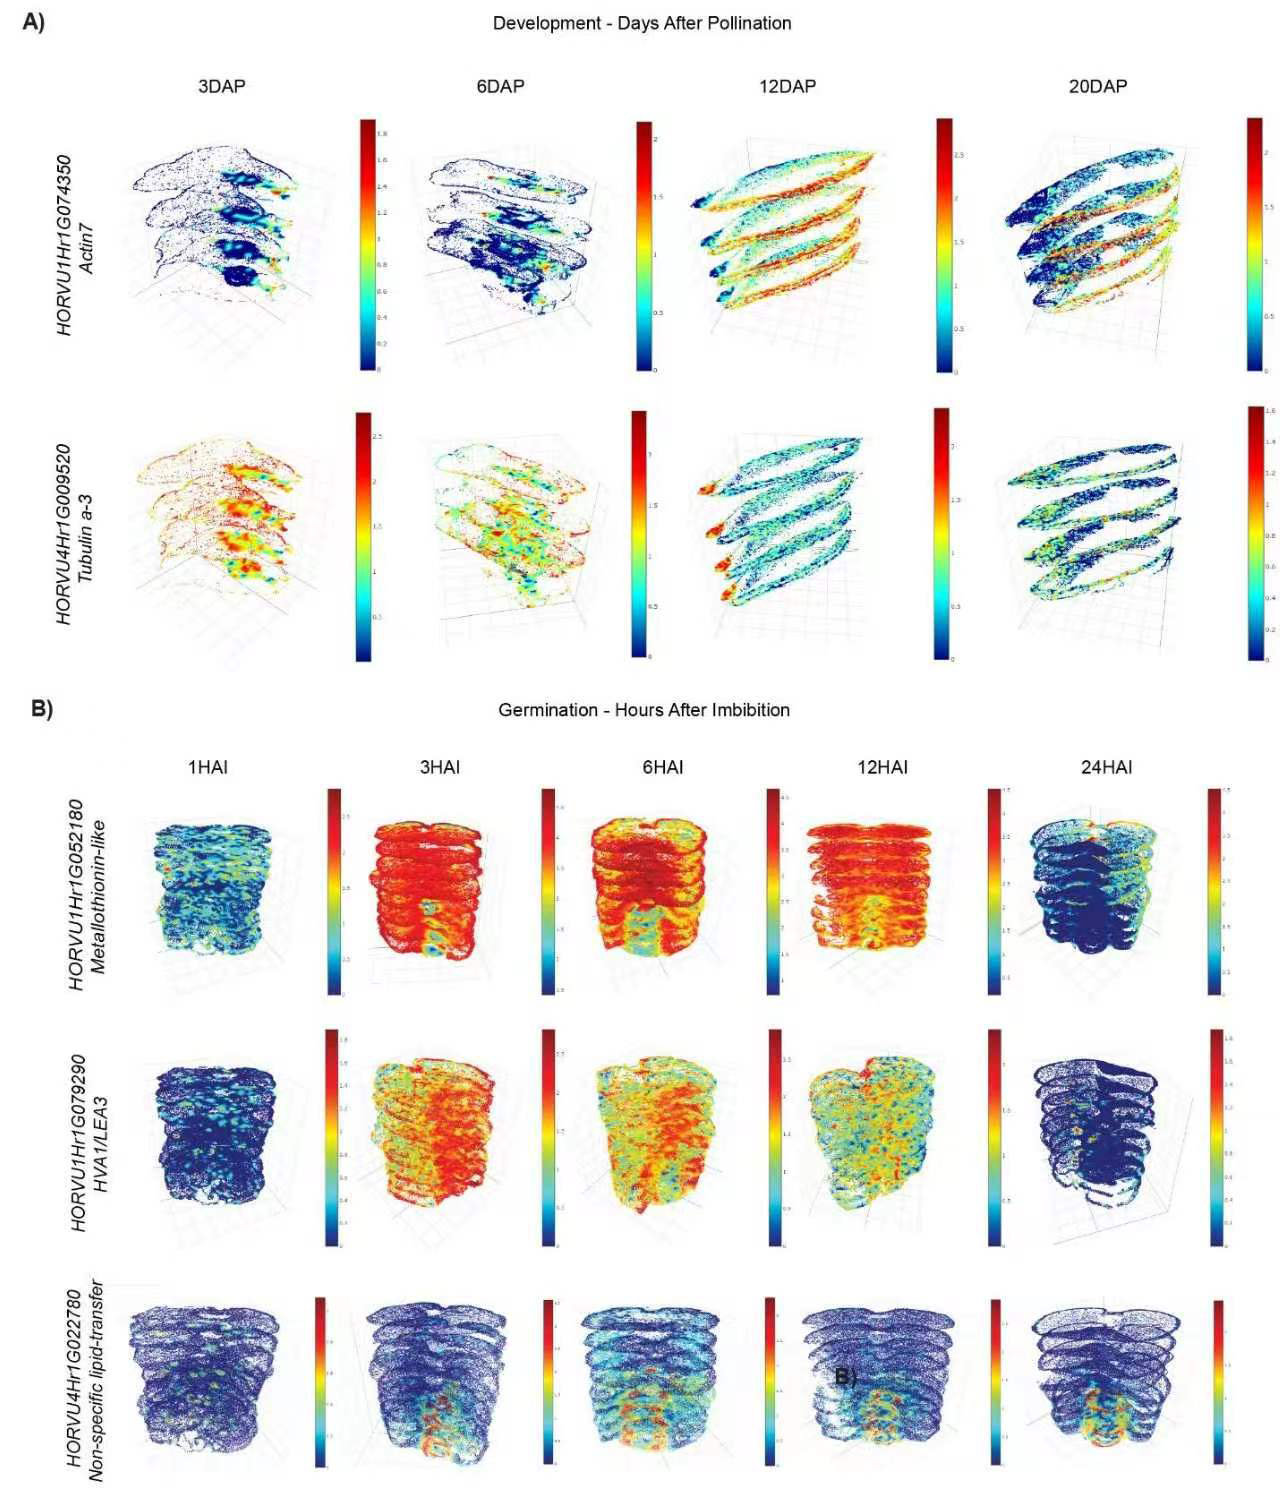
图5. 发育与萌发中呈均匀表达模式基因的三维表达图谱。
糖运输(Figure 6):HvSWEET4 发育期定位于子房、绿色组织与胚乳转移细胞,萌发期锁定糊粉层与盾片;HvSWEET11b 特异表达于珠心突起;HvSWEET15a 偏向胚性组织。三者空间模式与此前 qPCR、原位杂交结果高度一致,构成对图谱可靠性的外部验证。
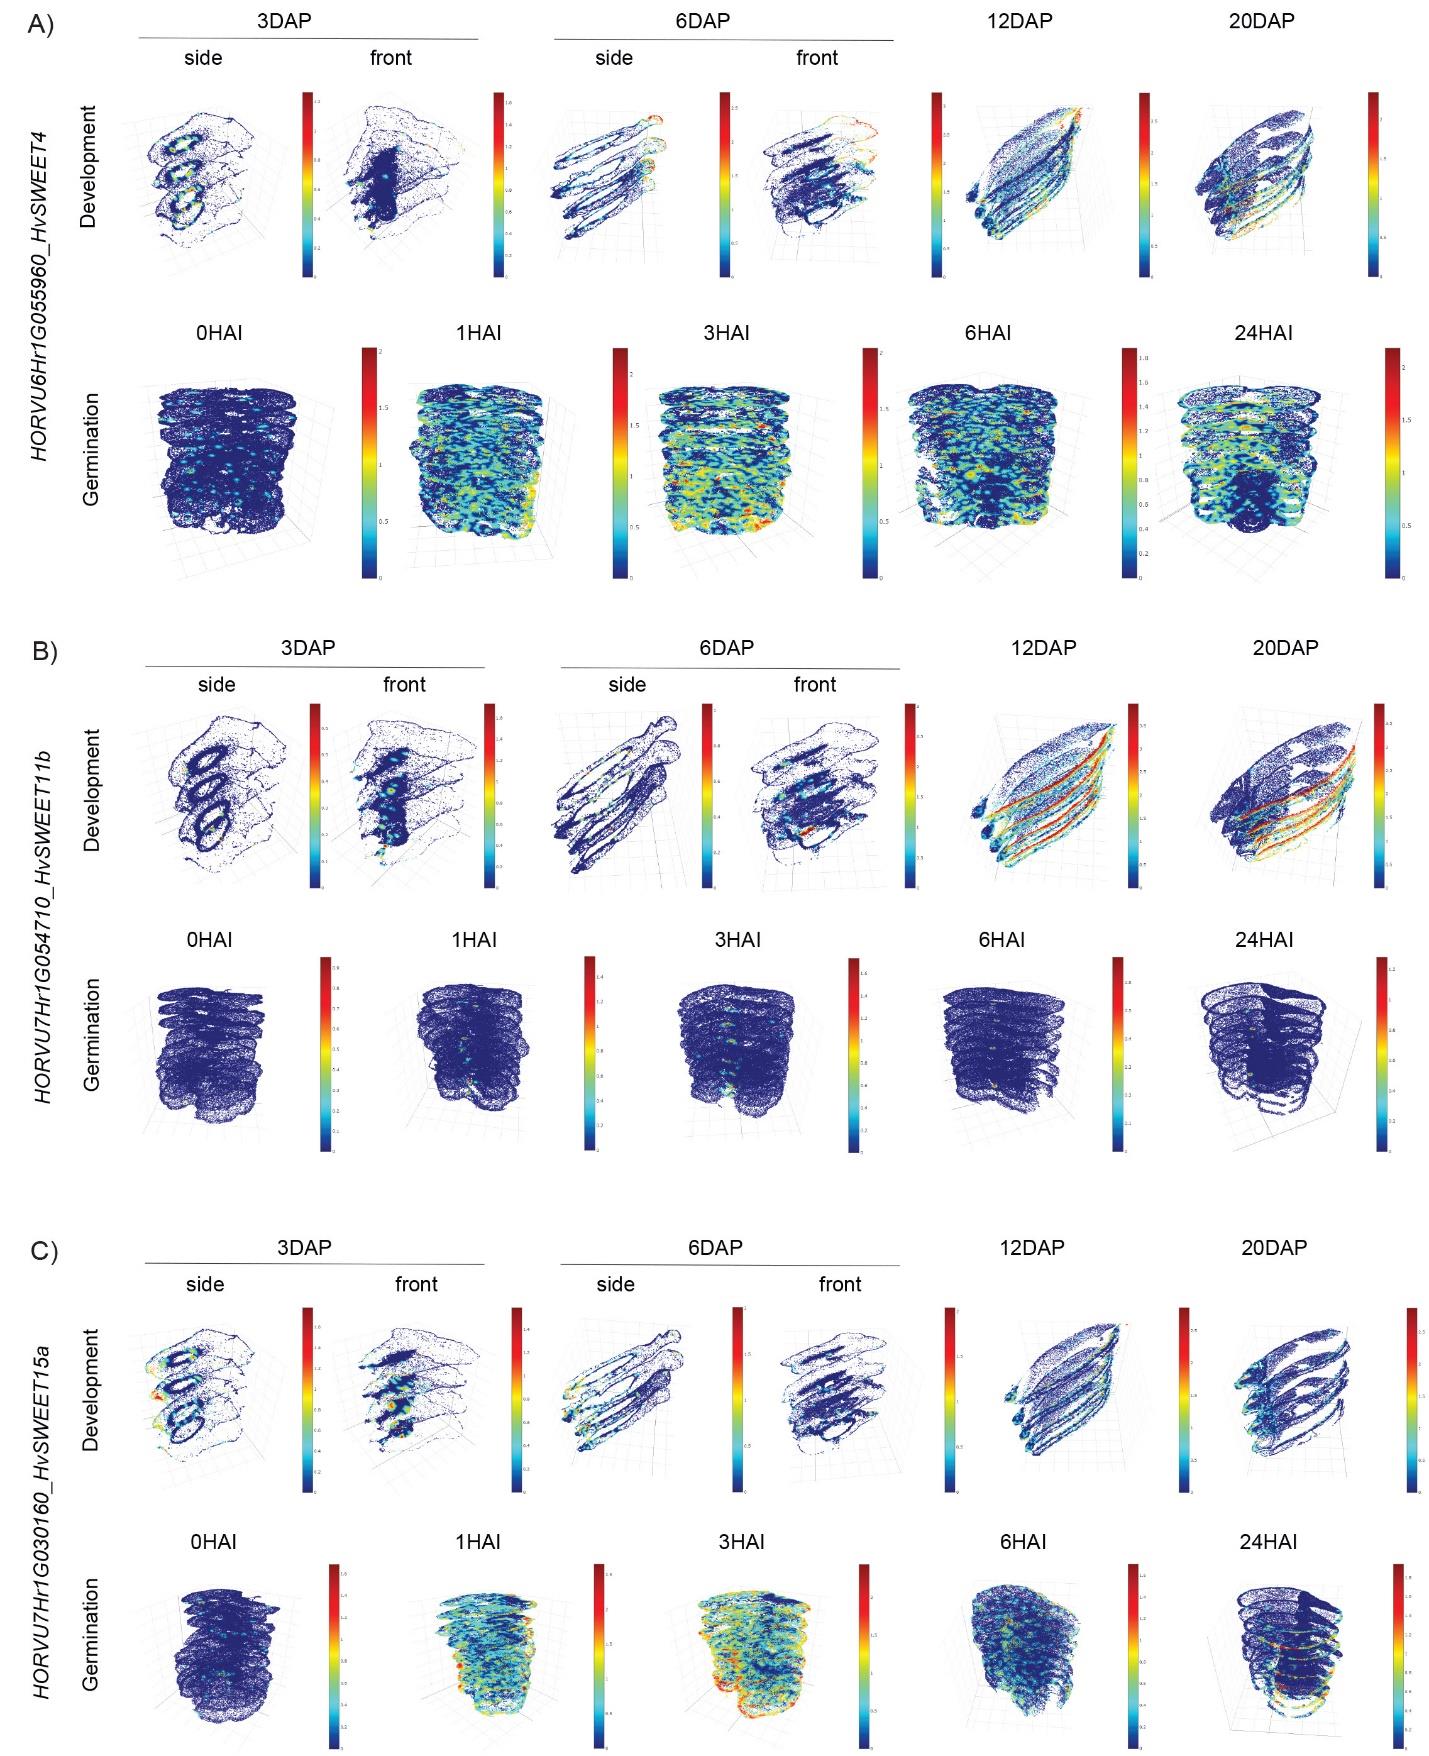
图6. SWEET 糖转运基因在二维与三维维度上的时空表达变异。
线粒体与叶绿体(Figure 7):线粒体生物发生相关基因(TOM/TIM/MPP 等)在萌发后 3 小时于胚芽、盾片区域爆发式上调,与水稻中报道的线粒体发生峰吻合;ICP55 等基因甚至呈现单侧糊粉层的不对称定位。
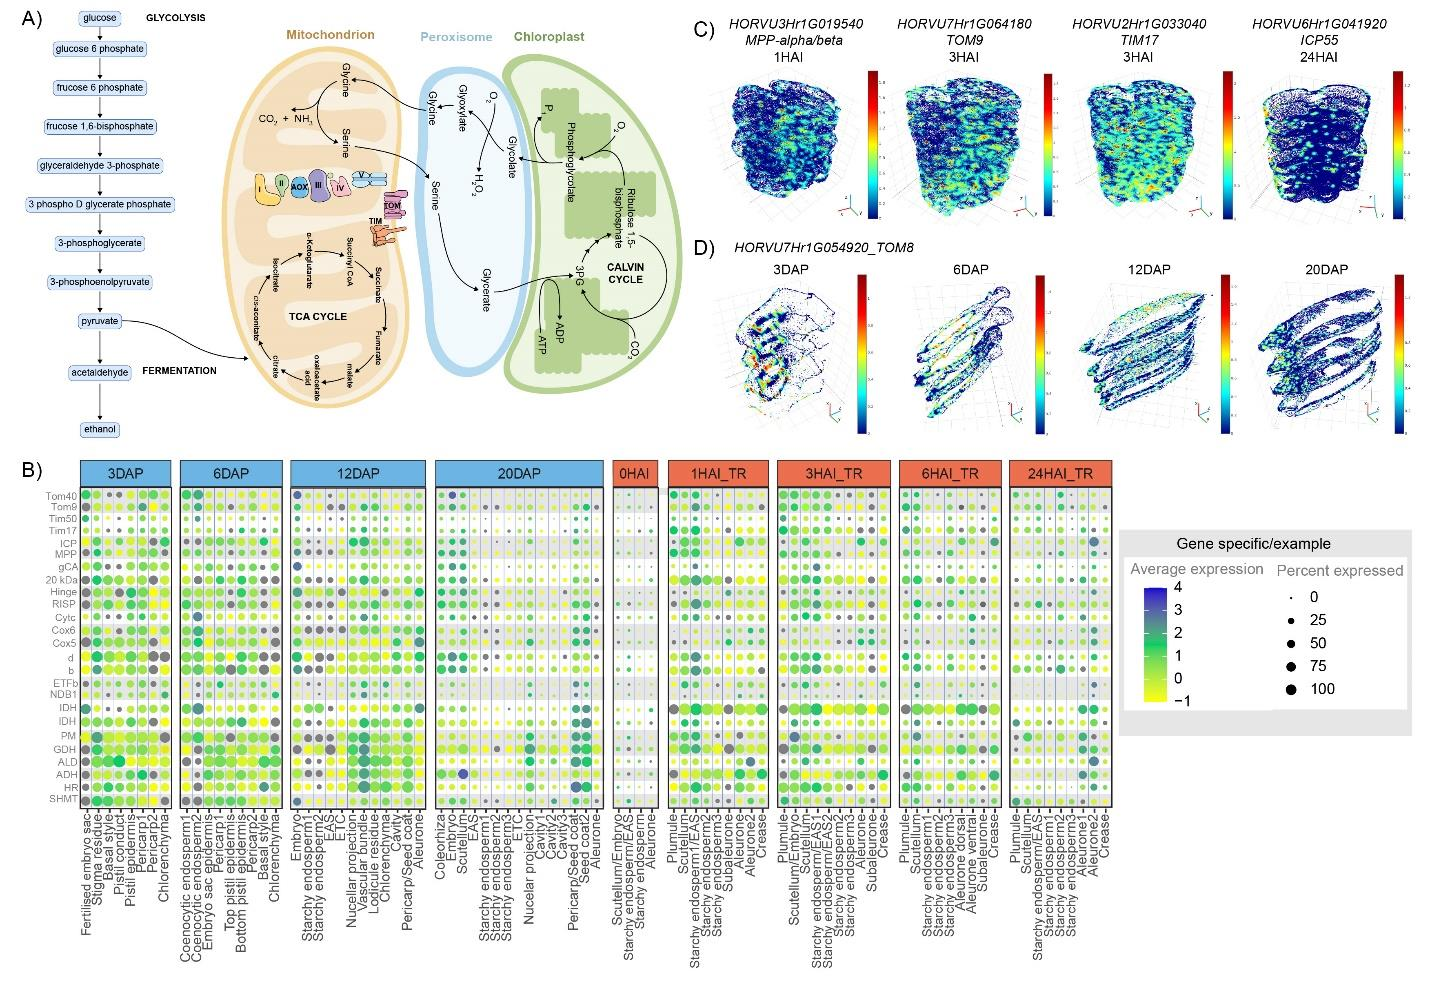
图7. 线粒体及其相关功能基因在颖果发育与萌发中的转录丰度动态。
四:激素代谢的亚组织级分辨率(Figure 8)
生长素:8 个生长素转运蛋白基因呈现精细分工——PIN1b 定位于胚,PIN1 定位于盾片邻近胚乳区(EAS),TRAN2 从受精胚乳转移;DRM1/ARP 在 20 天时于盾片和糊粉层高表达,提示其参与种子休眠的建立,这是该基因在种子休眠中表达的首次刻画。
赤霉素:GA 合成酶(GA20ox/GA3ox)与降解酶(GA2ox)在不同时期、不同组织中此消彼长;12 天时合成与降解基因的空间分布几乎完全镜像,展示了激素稳态在亚组织水平的精密调控。
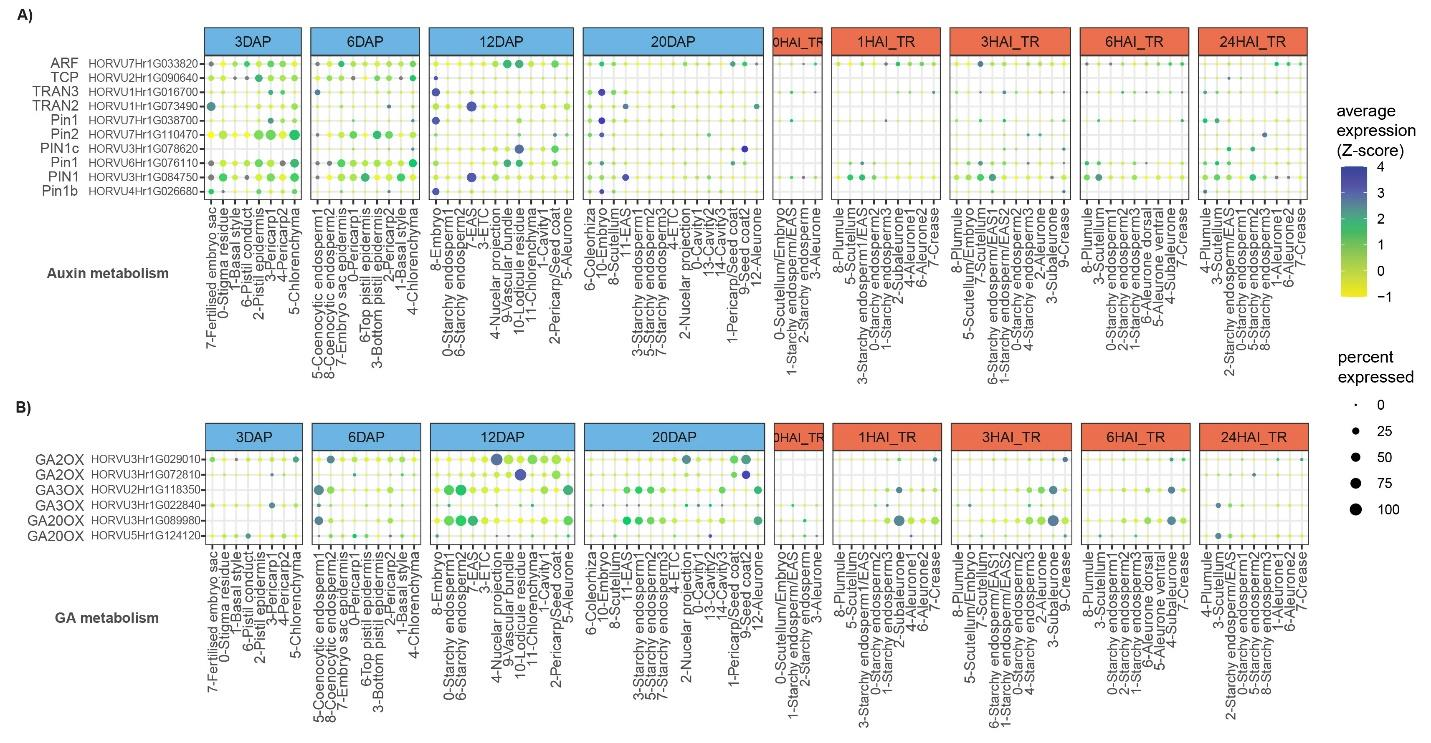
图8. 生长素与赤霉素代谢相关基因在发育与萌发中的表达模式。
五:糊粉层发育轨迹与转录因子路线图(Figure 9)
思路:糊粉层是萌发时分泌水解酶、动员胚乳储藏的关键组织。作者以其为范例,构建了从发育早期(3 天)到萌发完成(24 小时)的完整伪时间轨迹,轨迹顺序与真实生物学时间线高度吻合。
核心发现:鉴定出 109 个阶段特异性共表达模块——3 天对应有丝分裂与 DNA 包装,6 天富集叶绿体功能,储藏中期以淀粉代谢为主,晚期富集营养储藏与蛋白酶抑制,萌发期则转向翻译、RNA 加工与谷胱甘肽代谢。GA 信号两大关键转录因子 SLR1-like2(DELLA)与 GAMyb 呈现清晰的时空分工:前者主导发育期,后者在萌发期特异点亮糊粉层。TCP、E2F-DP、NF-Y、LOB、bZIP、WRKY、NAC 等转录因子家族沿轨迹依次富集,为籽粒性状精准改良提供了一份"时空坐标明确的靶点清单"。
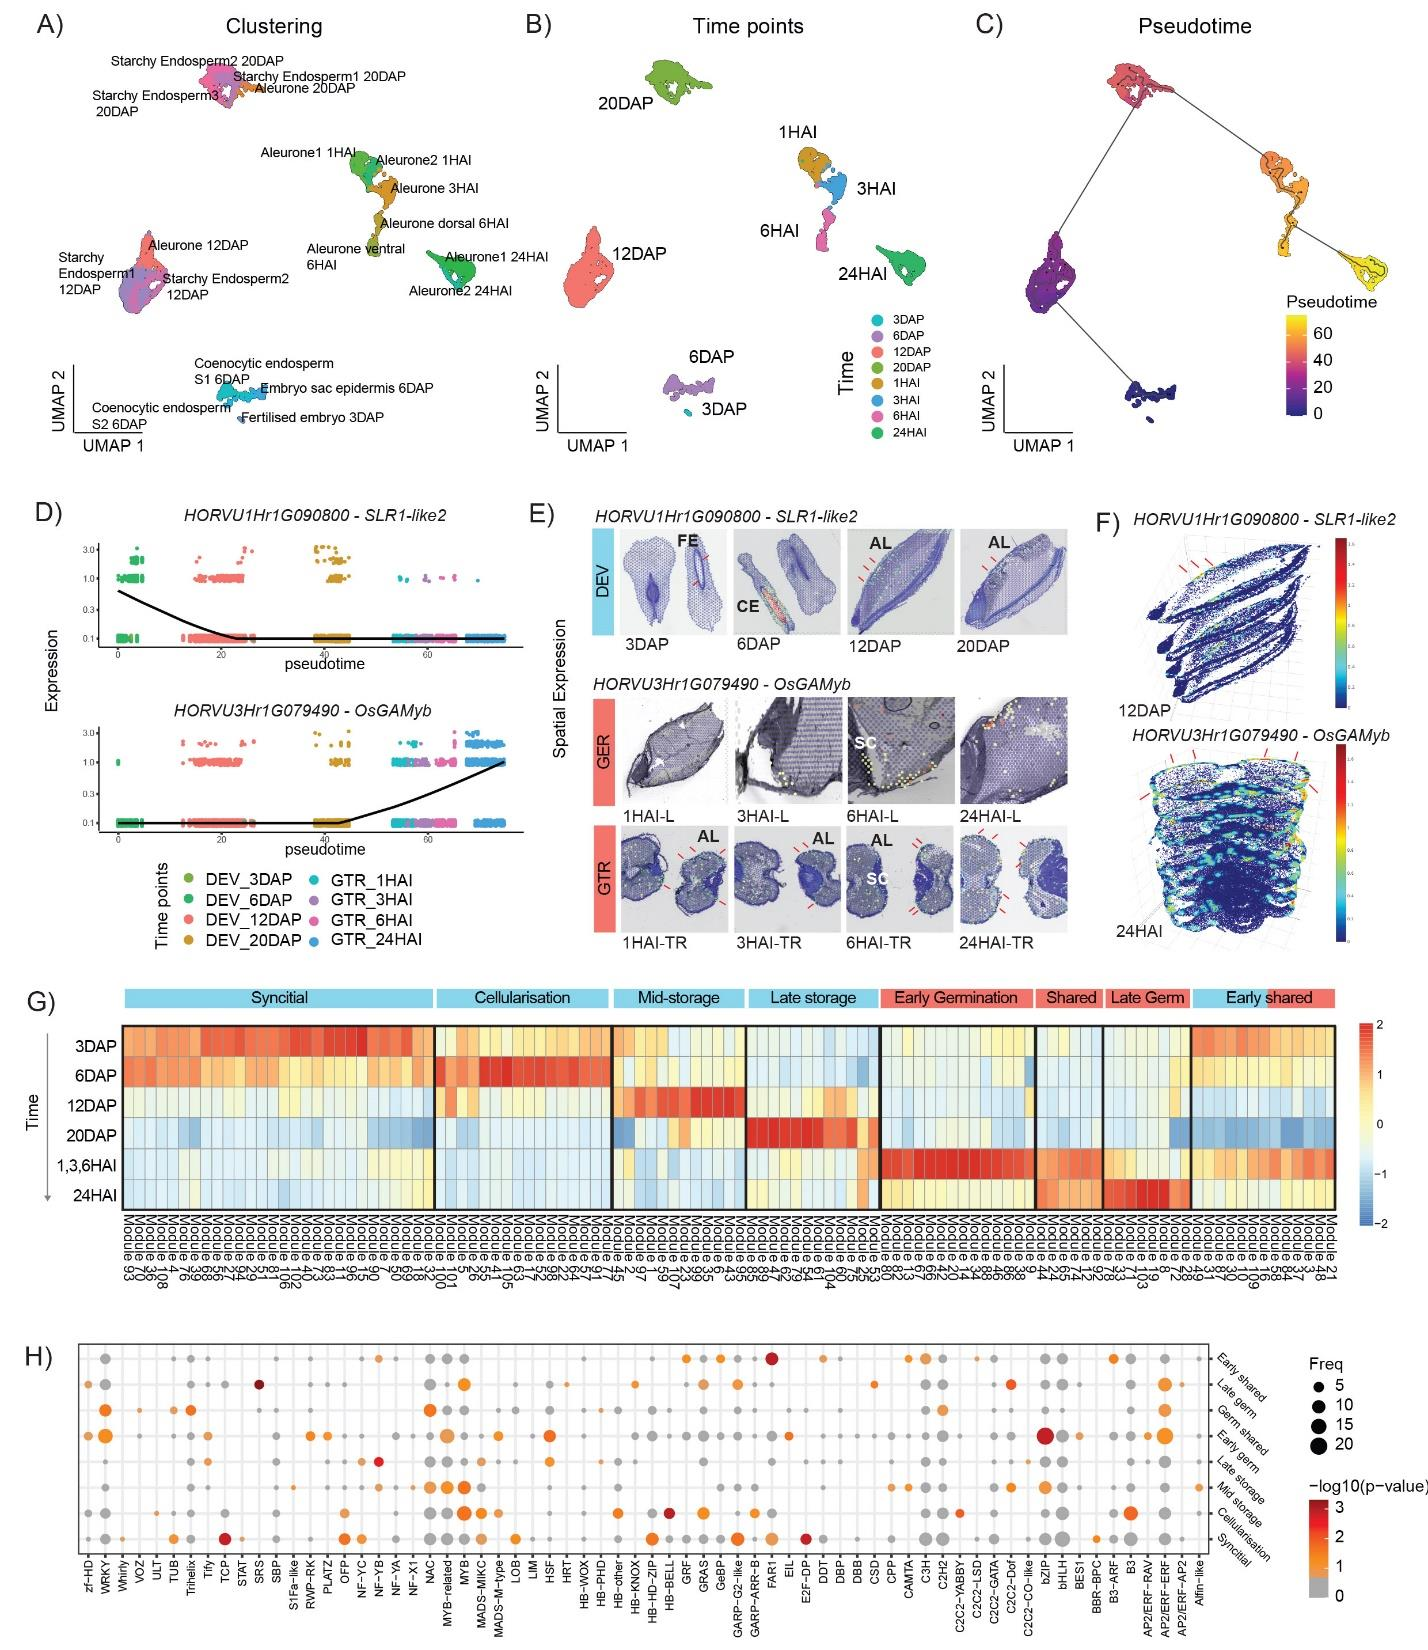
图9. 糊粉层组织从早期发育到萌发末期的伪时间轨迹、共表达模块与转录因子富集。