英文标题:Serial Spatial Transcriptomes Reveal Regulatory Transitions in Maize Leaf Development
发表期刊:Plant Biotechnology Journal
影响因子:11.2
发表时间:2026年5月
技术策略:空间转录组(优化的 OCT 包埋冷冻切片流程)、连续切片 3D 重建、RNA velocity 与 Monocle 3 轨迹分析、时间有序基因共表达网络(TO-GCN)、单细胞数据整合(SPOTlight 反卷积)、原位测序/padlock 探针原位杂交验证、CRISPR/Cas9 基因编辑(狗尾草)等
物种样本:玉米(Zea mays B73)幼苗茎尖,吸胀后 3 天取样,覆盖茎尖分生组织(SAM)、连续发育的叶原基(P1–P5)与胚芽鞘,14 个生物学重复、共 54 张切片
文章的整体思路是先把样本处理流程改造到适用于植物组织,再用连续切片构建玉米茎尖的三维表达图谱,接着通过发育轨迹和共表达网络筛选候选调控因子,最后用基因编辑验证功能。从空间表达模式一直做到表型层面,证据链相对完整。
一、植物组织样本优化流程(Figure 1)
作者对比了两种冷冻方案,最终推荐先做 OCT 浸渗、再进行两步 OCT 包埋(OCT-Immersion First),RNA 完整性(RIN)可以达到 9.2–9.4。他们进一步逐项考察了甲基丁烷、甲醇、染色剂以及蛋白酶 K/胃蛋白酶透化对 RNA 质量的影响,并明确了胃蛋白酶透化的适宜时间窗口。每张捕获芯片可以放 3–4 张同一幼苗的连续横切,为高通量三维重建提供了条件。
数据规模:14 个生物学重复、共 54 张切片;重复样本间 spot 的 Spearman 相关系数为 0.943–0.982,线粒体基因占比低于 4%、叶绿体基因低于 1%,每个 spot 中位检出 4623–8416 个基因。
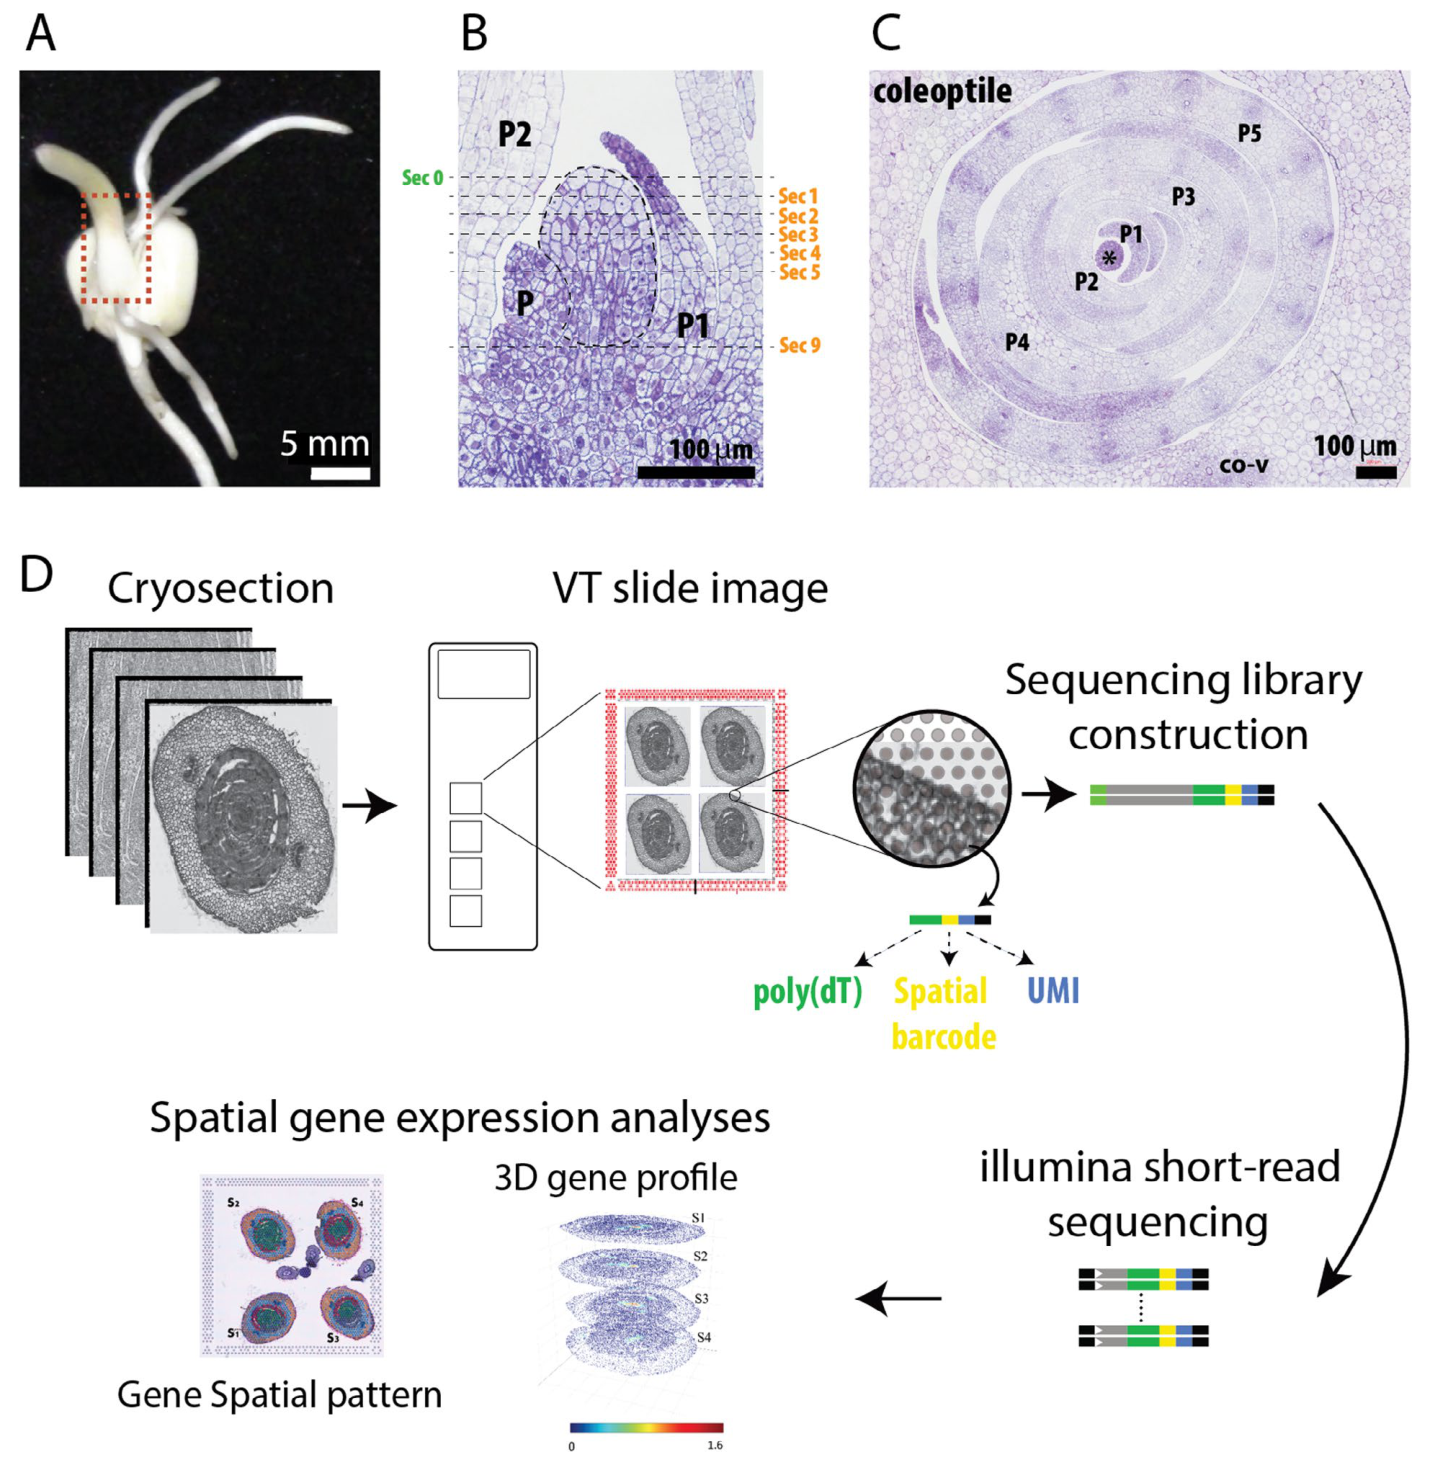
图1. 玉米发育中叶原基切片的形态解剖特征与空间转录组实验流程示意图。
二、茎尖三维图谱与可靠性验证(Figure 2 & 3)
结构域划分:以 SAM 尖端作为参照点,把组织中的 spot 划分为 7 个结构域——SAM、P1_P2、P3、P4、P5、胚芽鞘以及胚芽鞘维管束(co_v)。UMAP 上 spot 自然聚成三组,从 SAM 到 P5 则呈现连续的表达渐变,构成一条清晰的发育轴。
可靠性验证:作者从三个方面做了印证。一是标记基因,KN1、NAC119 准确定位于 SAM,维管标记 AIC4、DOF11 富集在胚芽鞘维管束;二是与已发表的原位测序(ISS)图谱比对,90 个基因中有 69 个空间模式高度吻合,另有 18 个 ISS 未能检出的低表达基因被本研究捕获;三是与 Kranz 细胞分化调控网络(AIL6/ANT1/ANT3 等)以及单细胞数据(Spearman ρ = 0.80)的结果一致,并用 padlock 探针原位杂交做了确认。
表达趋势(Figure 3):层次聚类得到 7 个基因趋势簇,GO 富集显示发育主线大致沿着分生组织增殖、染色质与组蛋白修饰驱动的表观重塑、再到防御与次生代谢依次展开;其中胚芽鞘表现出提前启动防御准备的特征。
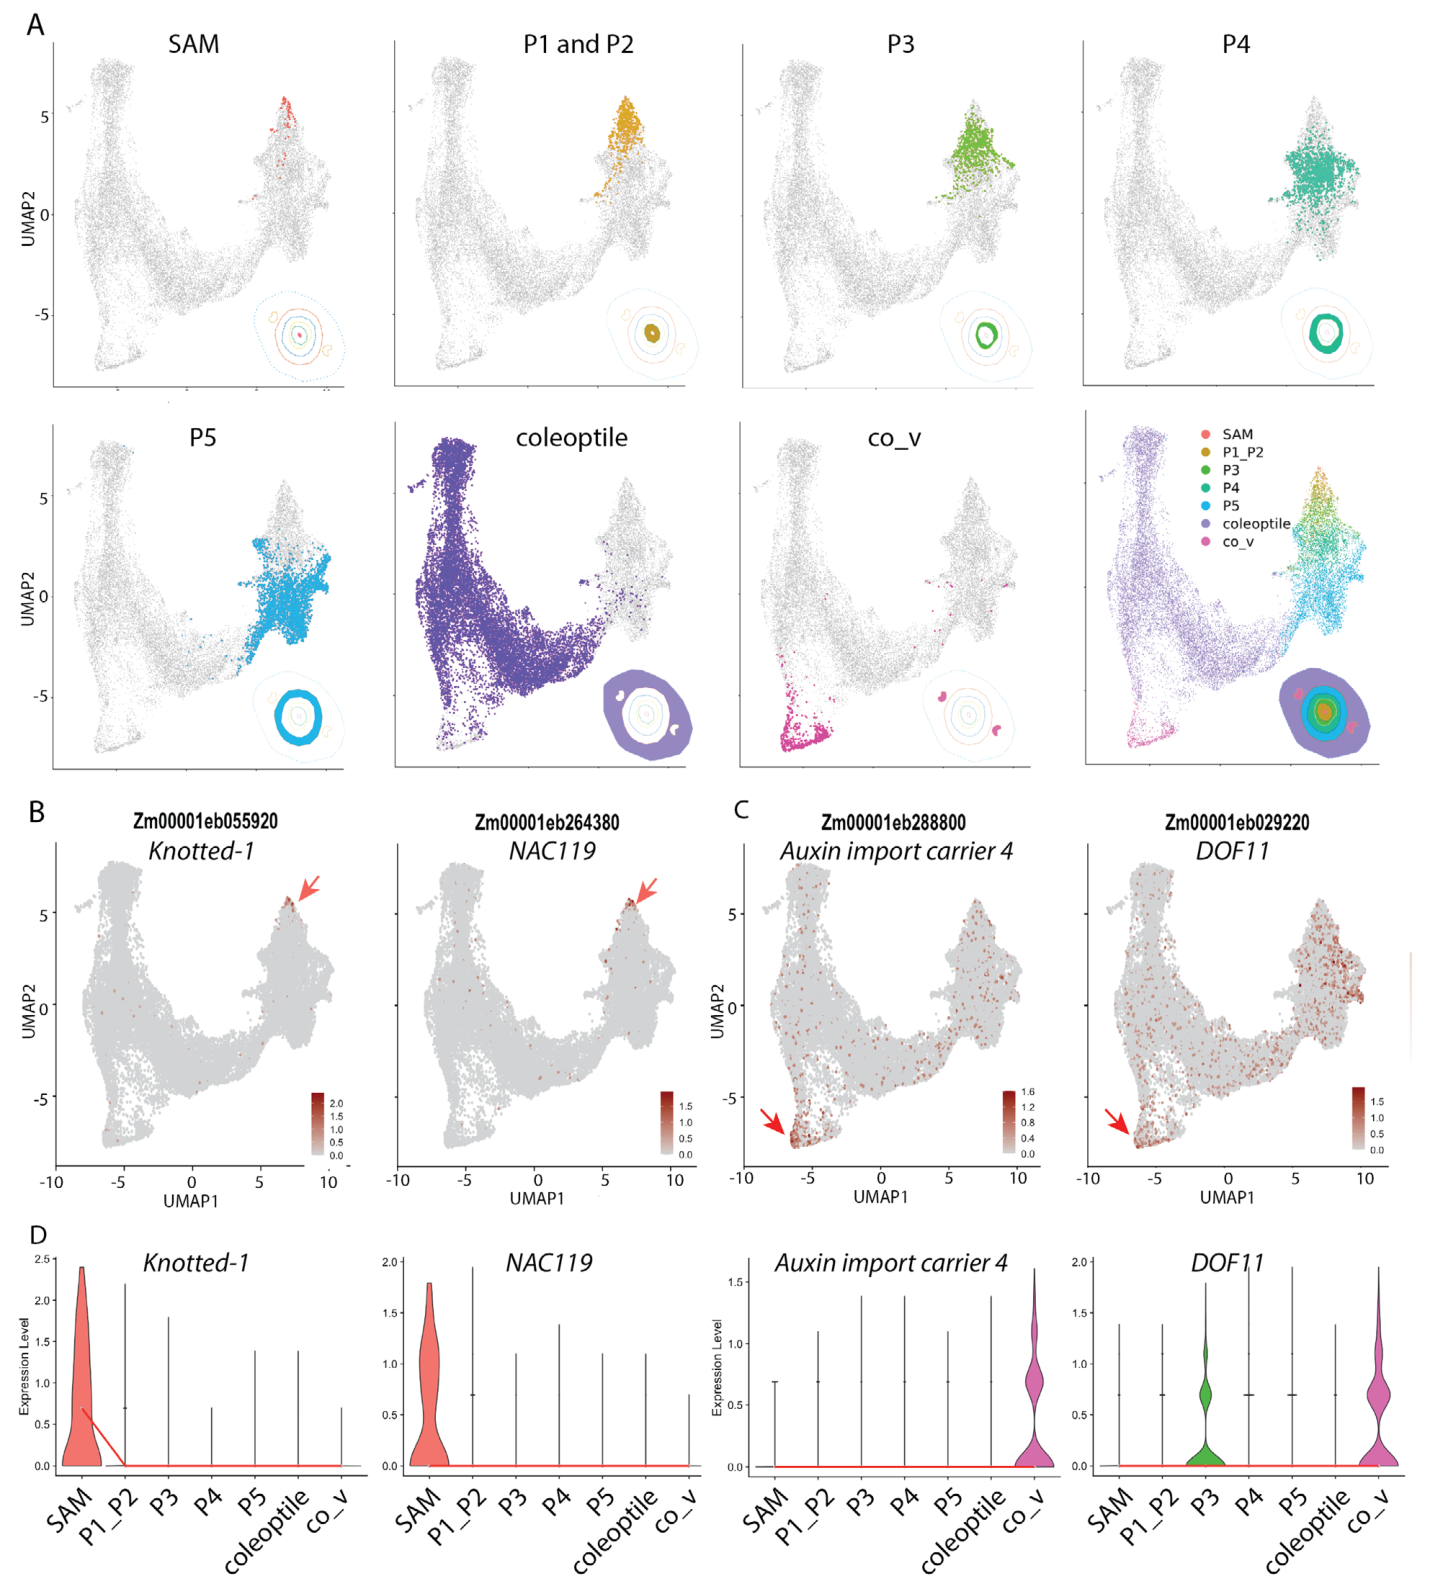
图2. 玉米茎尖空间转录组 UMAP 图谱及 SAM、维管已知标记基因的表达验证。
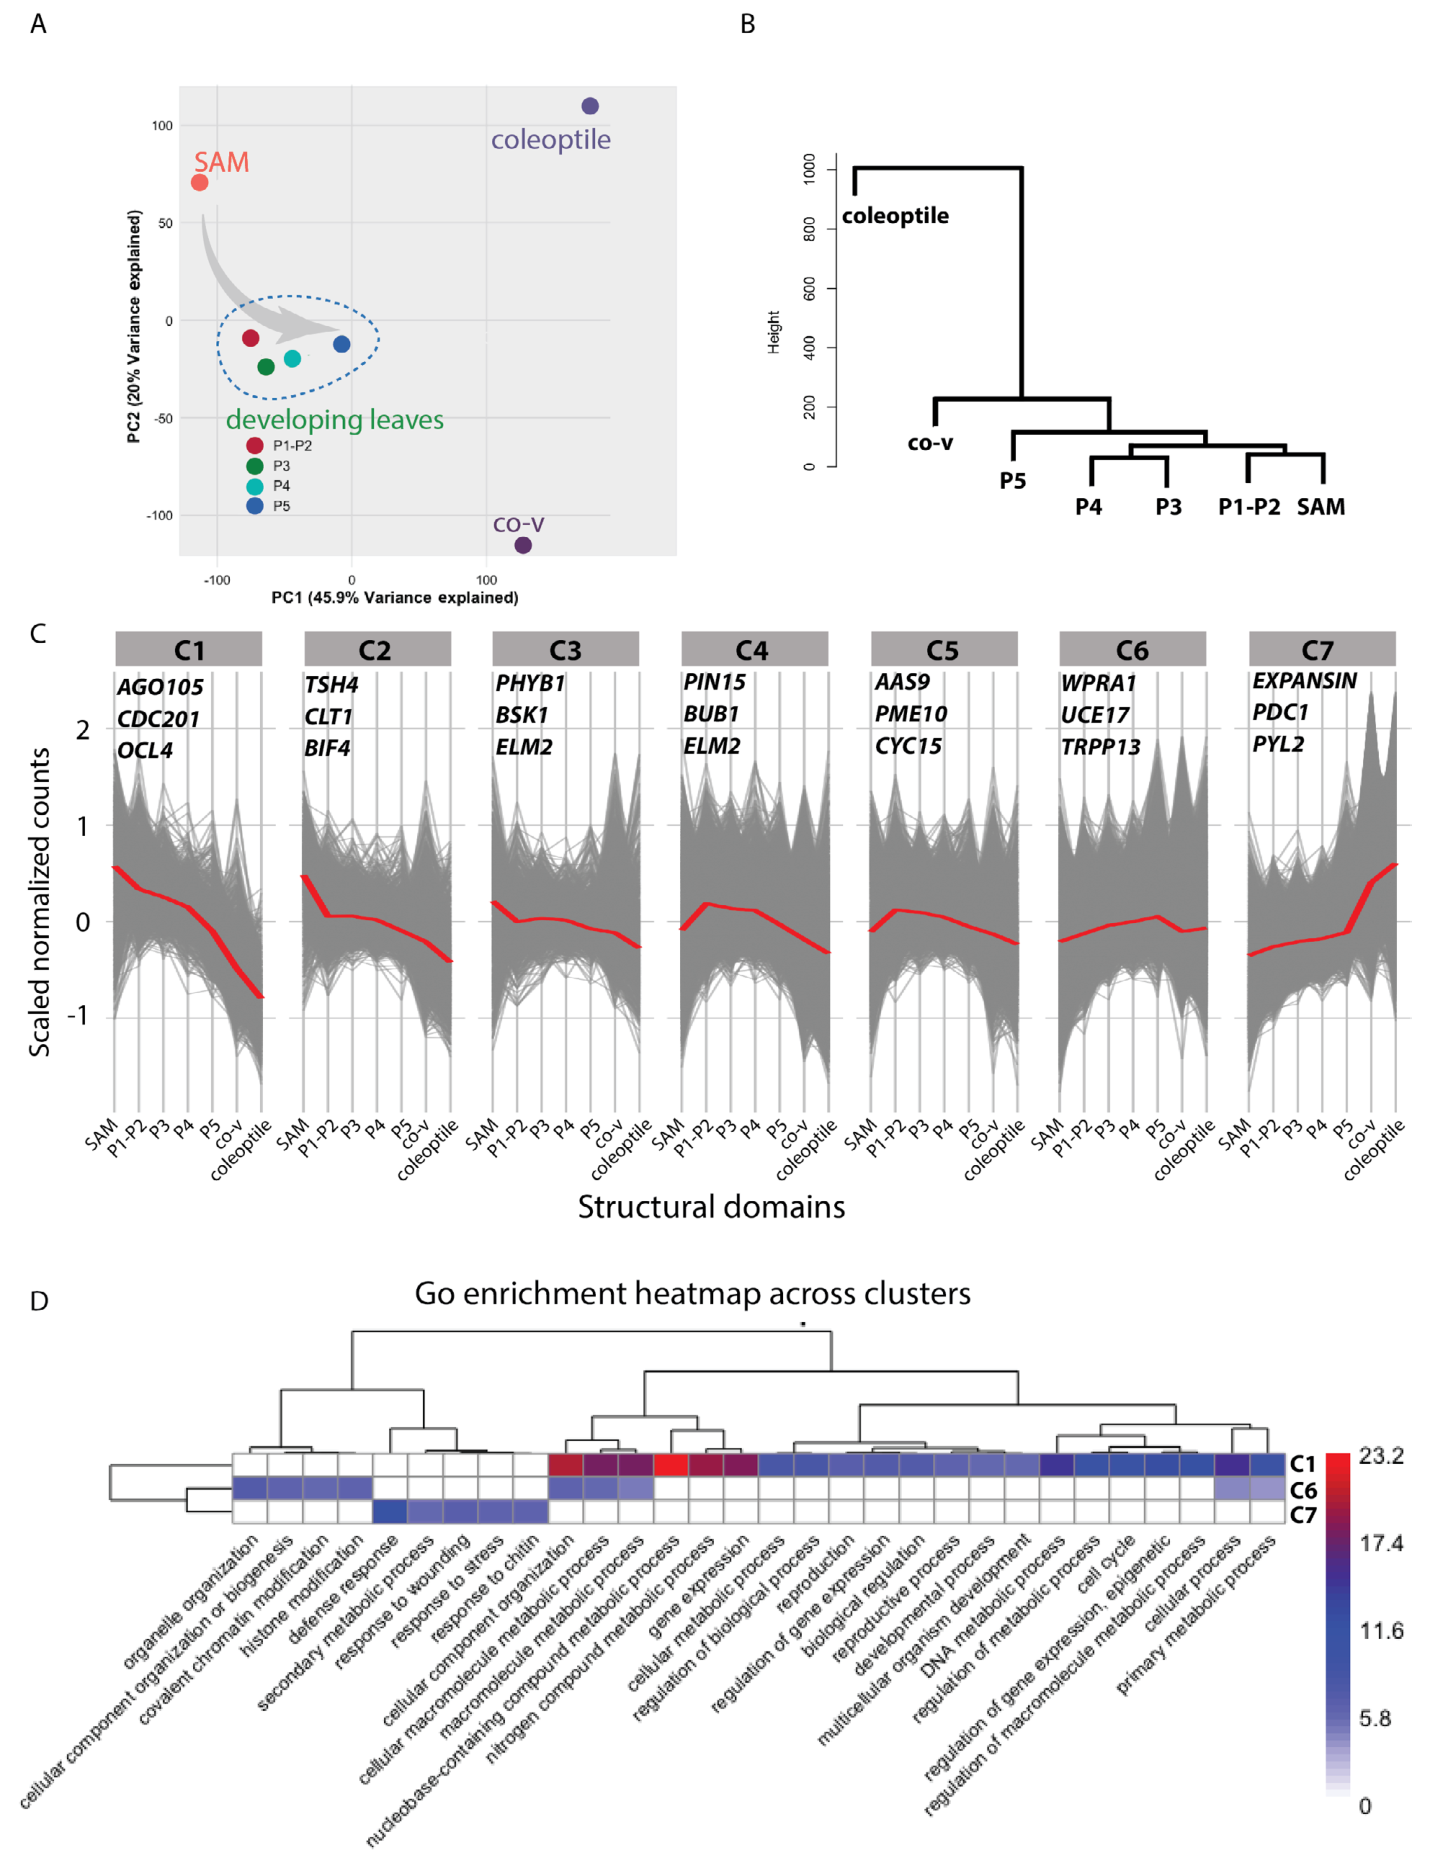
图3. 玉米发育茎尖不同结构域的基因表达谱、趋势聚类与 GO 功能富集。
三、细胞类型鉴定与胚芽鞘内部的异质性(Figure 4)
方法:无监督聚类共得到 33 个聚类,结合组织学上的对应关系归并为 12 个组织超群(supergroup)。
叶片一侧:SAM_P4(覆盖 SAM 至 P3–P4)富含 MYB54、mads36 及赤霉素调控基因,主导增殖程序;leaf_meso 偏向防御与磷稳态;leaf_vein 则富集激素信号与次生代谢相关基因。三者之间形成了生长与信号响应上的分工。
胚芽鞘一侧:组织学上看,它只是形态均一的薄壁组织,转录组却分辨出近轴/远轴表皮、近维管束/极部/核心叶肉、近轴/远轴维管束等多个分子结构域。其中远轴表皮偏光合与逆境响应,近轴表皮偏脂肪酸伸长和角质层蜡质沉积,远轴维管束富集 MYB118、SAUR 等生长素调控基因,近轴维管束则高表达赤霉素合成酶 ga20ox7。可见形态上的均匀,并不意味着分子层面也同质。
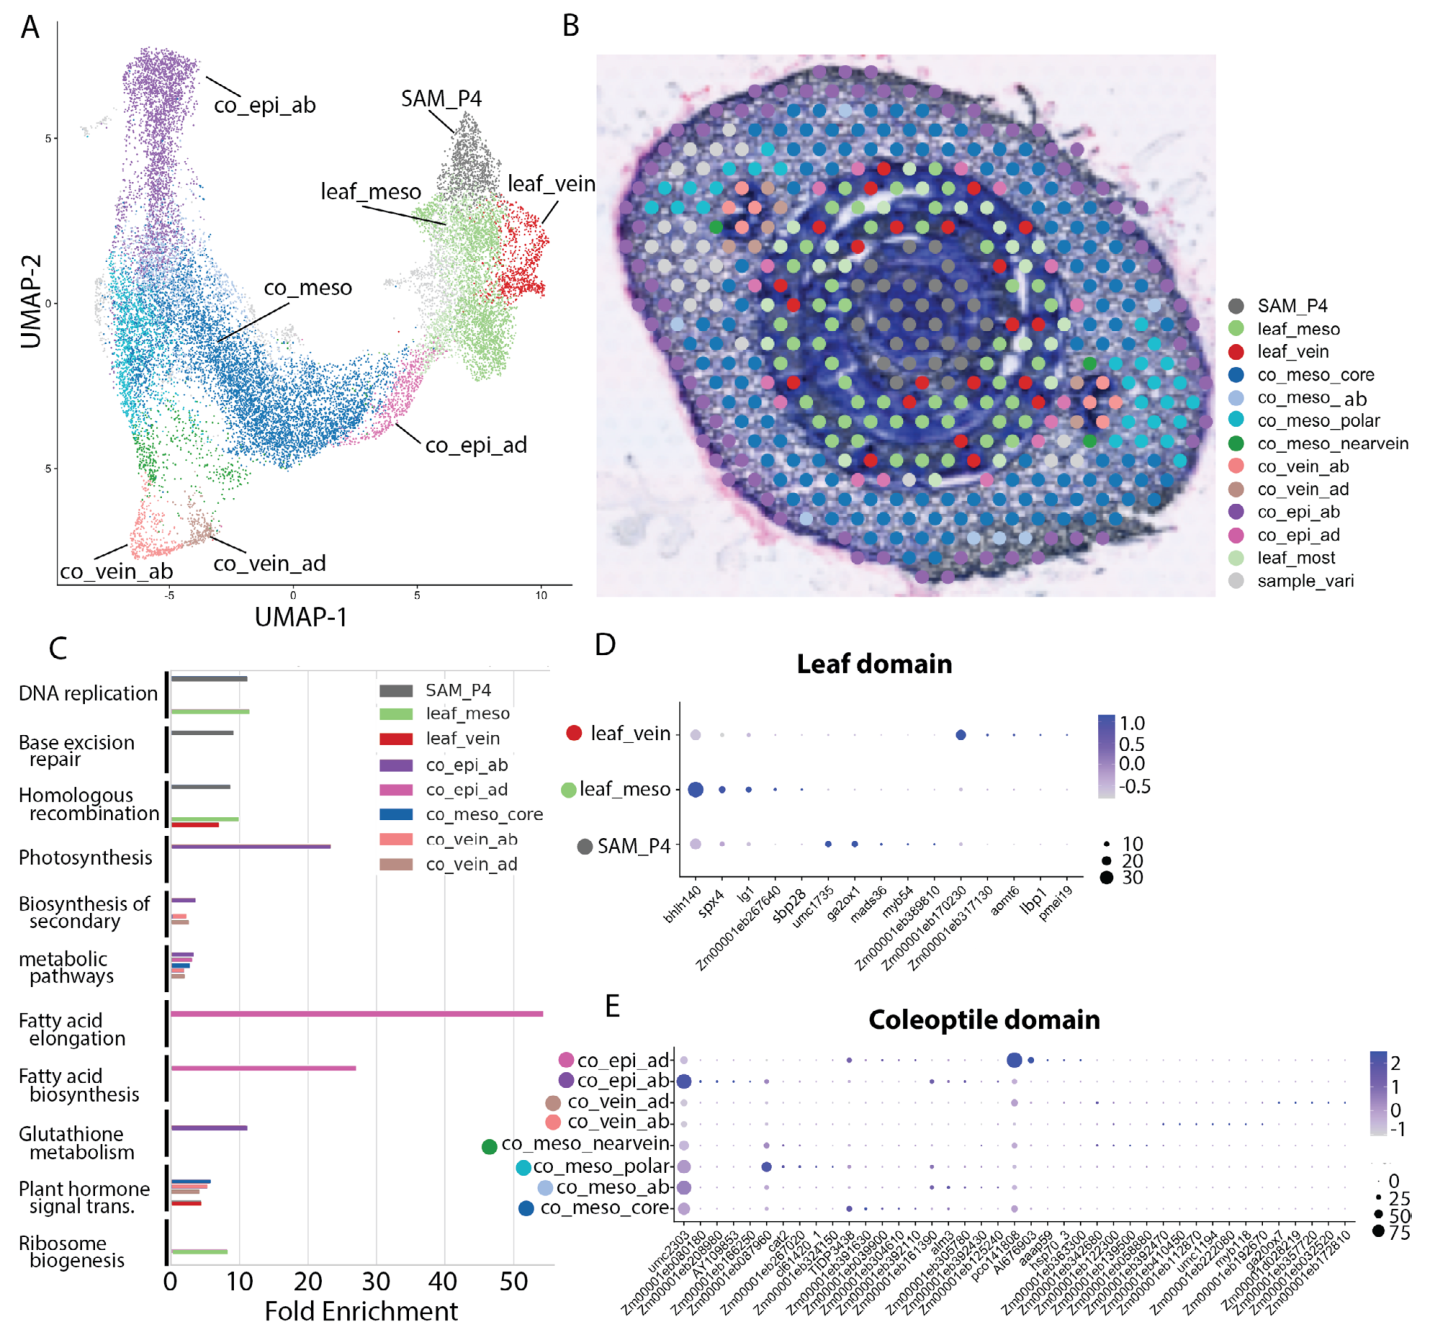
图4. 基于空间基因表达谱的玉米茎尖组织鉴定、结构域划分与功能特化分析。
四、发育轨迹与时间有序共表达网络(Figure 5)
轨迹推断:RNA velocity 与 Monocle 3 伪时间两种方法各自独立地重现了 SAM→P1→P2→P3→P4→P5 的连续发育顺序,说明表达上的渐变确实对应形态成熟的过程。作者也指出,由于 Visium 只捕获 3′ 端,未剪接 reads 仅占约 7%,RNA velocity 用于植物数据时需要谨慎。这一点对做植物空间转录组的同行很有参考价值。
TO-GCN 网络:1265 个转录因子按共表达水平(PCC > 0.95)划分为 13 个层级,与发育阶段一一对应。L1–L4 富集于 SAM,包含维持分生组织的 KN1 和 WUS 样基因 NS1;L5–L6 对应 P1–P2,ARF08/ARF26 在此建立叶极性;L7–L8 对应 P3,bHLH13、MYB85、GRF15 参与叶形态建成与叶脉分化;L9–L10 对应 P4–P5,以 MYB11、GRAS54 标志维管成熟。这些层级实际上给出了一份按发育先后排列的调控候选清单。
单细胞整合:以已发表的玉米 scRNA-seq 为参照,作者用 Seurat anchors 和 SPOTlight 反卷积把细胞类型身份映射回空间位置,可以看到 SAM 相关贡献从分生组织核心向 P1–P2 逐步下降,维管细胞则在 P3–P5 的叶脉区域逐渐富集。
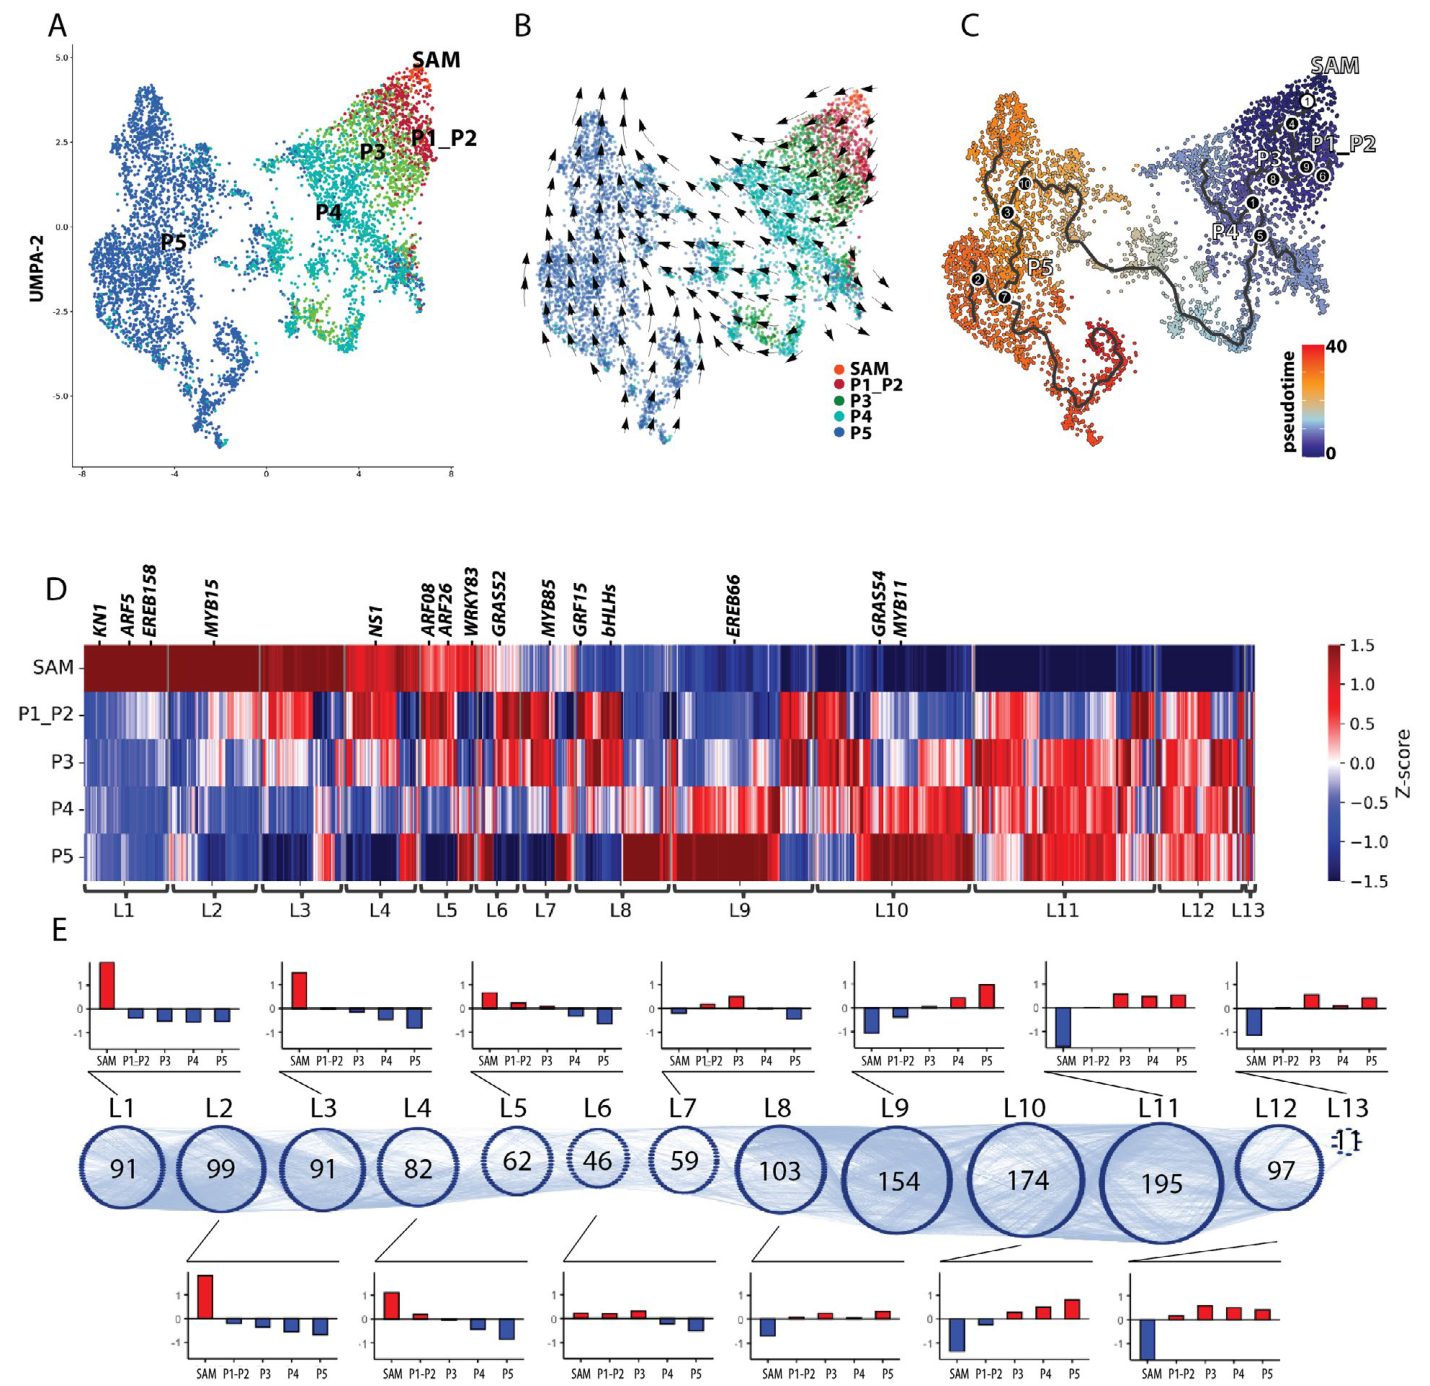
图5. SAM 与胚叶的发育轨迹(RNA velocity、伪时间)及 TO-GCN 转录因子层级共表达网络。
五、候选调控因子挖掘与 GRF 功能验证(Figure 6 & 7)
候选因子:三维重建显示,已知的开花转变因子 DLF1 从 SAM 开始、沿远-近轴方向一直富集到 P3。作者取 SAM 特异差异基因与 TO-GCN 早期层级(L1/L2)的交集,锁定 30 个高置信度的 SAM 调控因子,包括介导细胞分裂素响应的 GBP15、边界因子 GATA26(HAN 样)、整合生长素与细胞分裂素信号的 ARF35/ARF4、CUC 样基因 NAC114/NAC119,以及 GRF–GIF 增殖模块中的 GRF6。其中不少是玉米营养期 SAM 此前未被报道的候选标记。
功能验证:作者选取 GRF6(SAM 富集)、GRF8(最早期表达程序)和 GRF10(P4–P5 远端峰值)三个家族成员,三者在发育叶脉中都呈现空间富集。由于玉米转化困难,他们改用模式禾草狗尾草,通过 CRISPR/Cas9 敲除相应的同源基因:三个突变体的 SAM 都明显变小(高宽比下降)、株高降低,其中 GRF10 突变体还特异性表现为叶片变短,与各自空间表达域的预测基本一致。
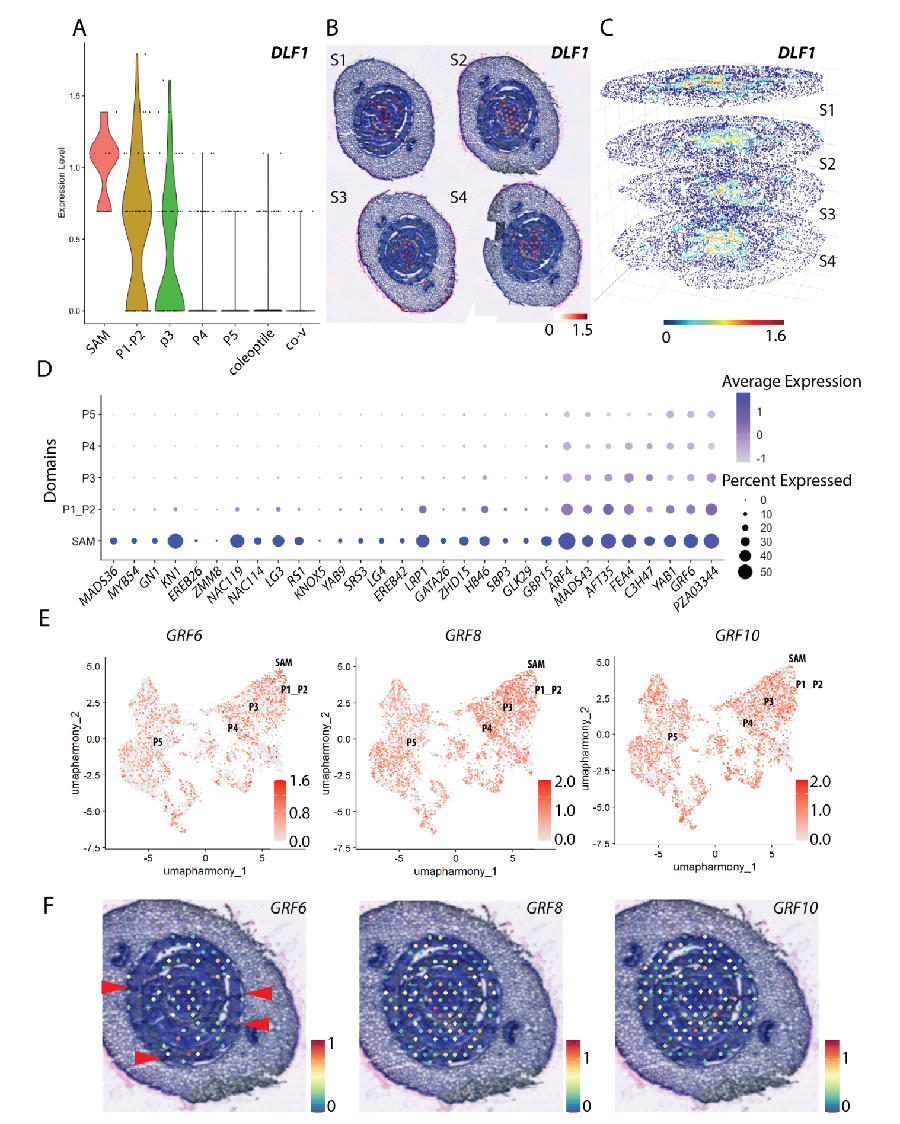
图6. 玉米茎尖发育基因(DLF1 与 GRF 家族)的时空表达动态、3D 重建及 SAM 候选转录因子筛选。
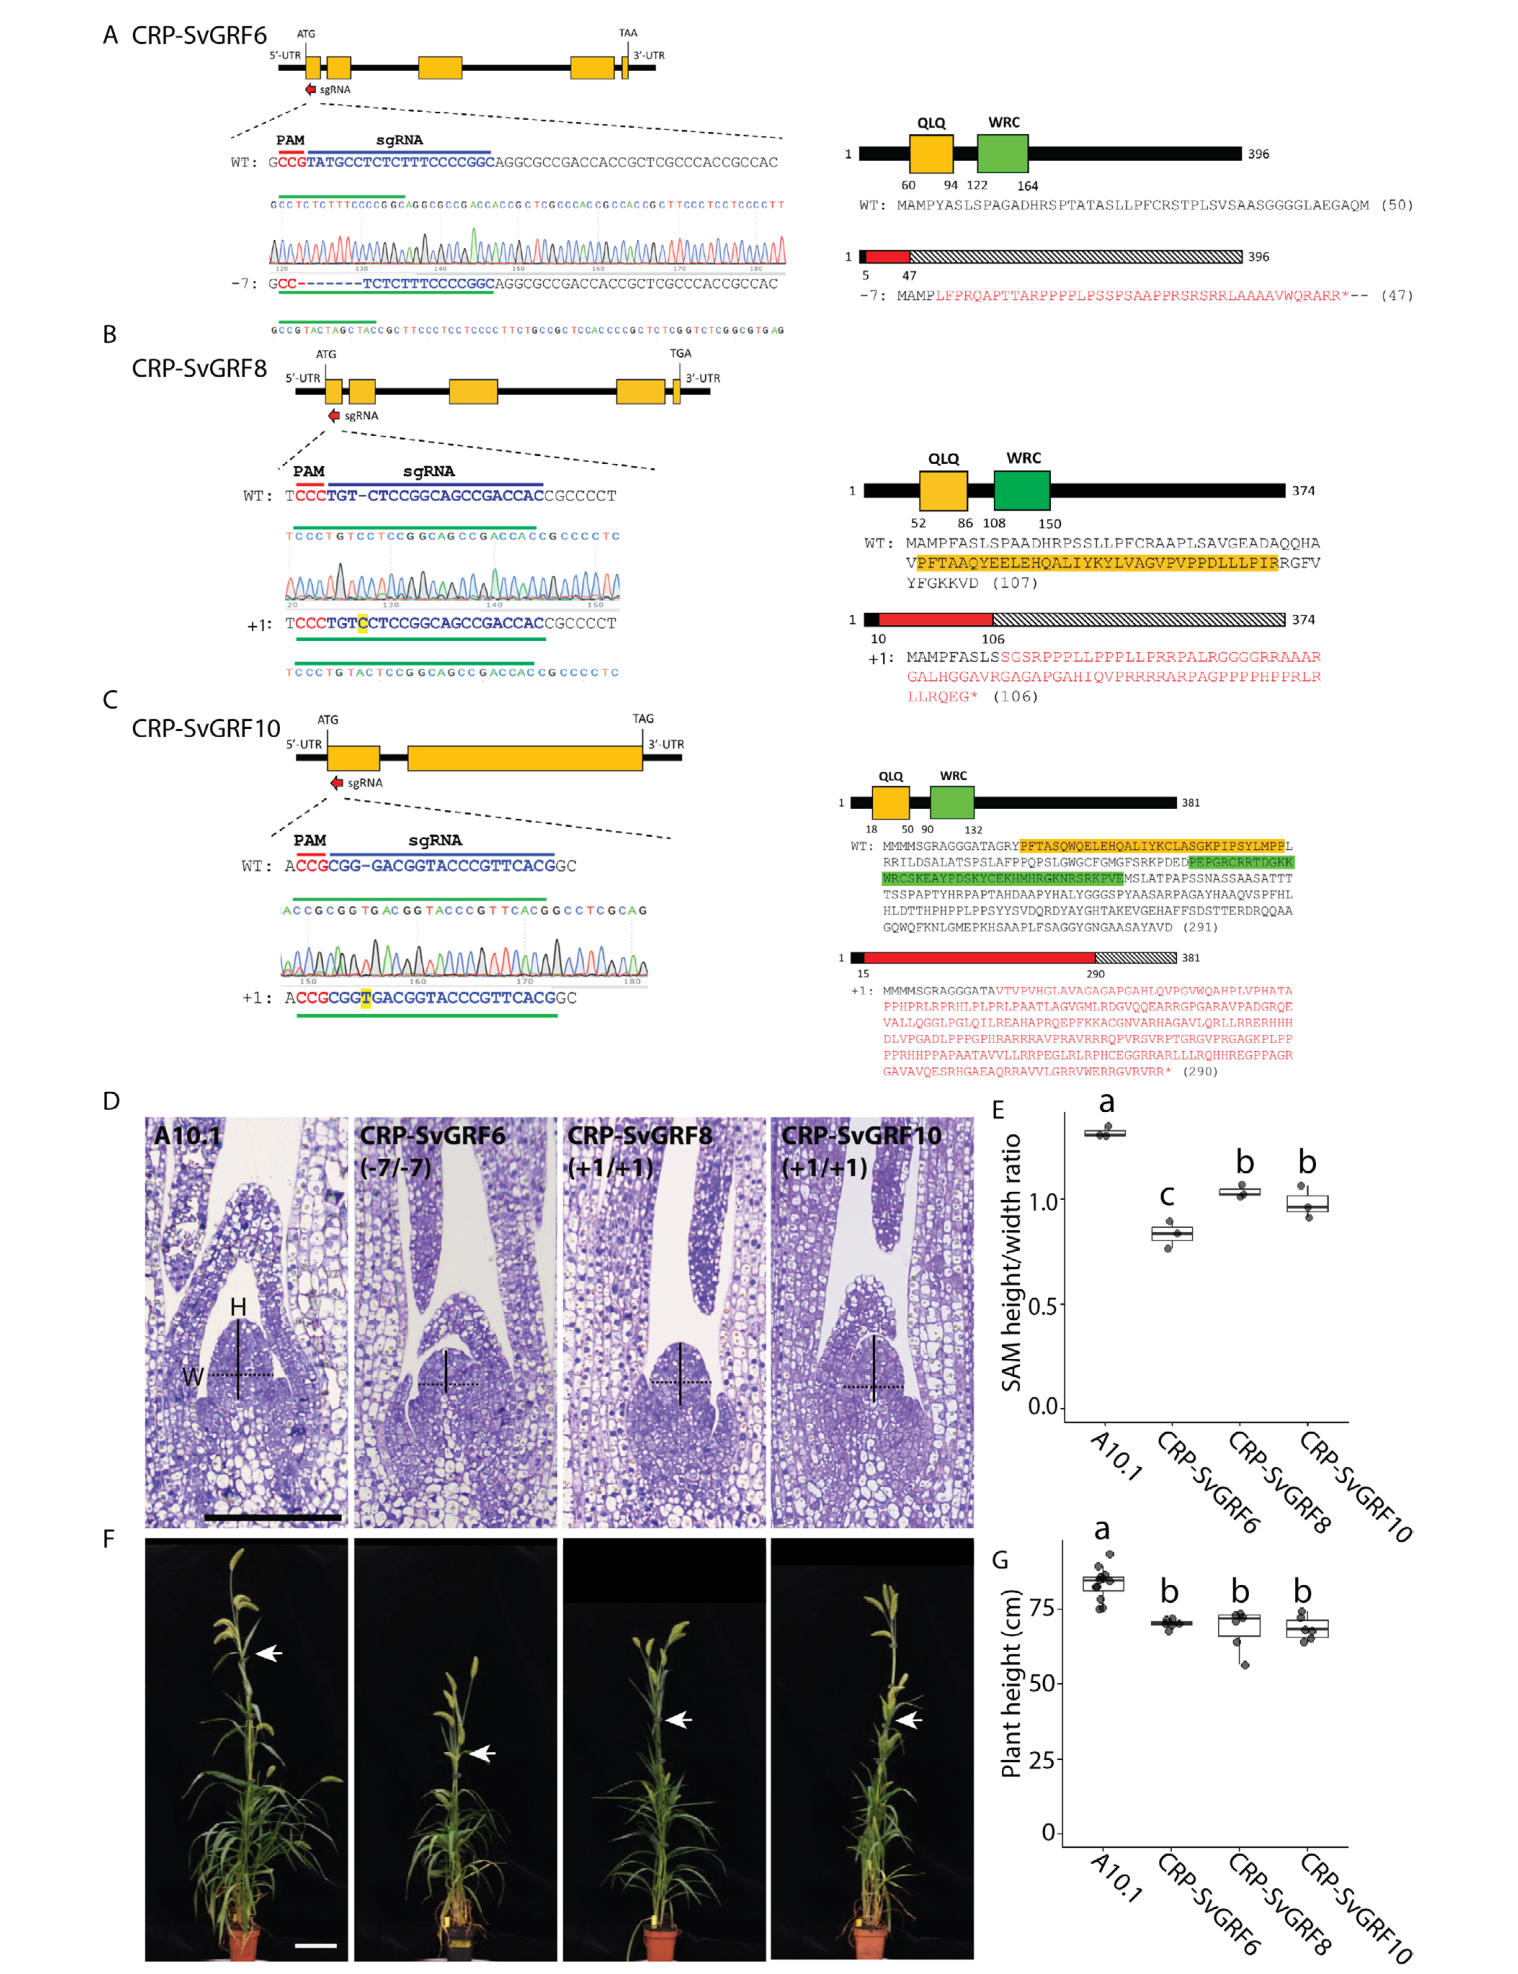
图7. GRF 基因的 CRISPR/Cas9 编辑设计、突变体 SAM 形态与株高表型验证(狗尾草)。